Podsumowanie wątku 10
Streszczenie wątku 10
Gospodarka wodna roślin
Komórka jako układ osmotyczny
Potencjał wody (psi, określa zdolność wody do przemieszczania się w danym układzie w porównaniu z czystą wodą w przyjętych warunkach odniesienia. Potencjał czystej wody wynosi 0.
psiIndeks dolny ww = psiIndeks dolny ss + psiIndeks dolny pp
gdzie:
psiIndeks dolny ww to potencjał wody;
psiIndeks dolny ssto potencjał osmotyczny;
psiIndeks dolny ppto potencjał ciśnienia turgorowego.
Potencjał osmotyczny (psi to potencjał wody w roztworze obniżony względem czystej wody przez obecność substancji rozpuszczonych.
Stan napięcia ściany komórkowej nazywa się turgorem, a nacisk, jaki ściana wywiera na protoplast komórki, to potencjał ciśnienia turgorowego (psi).
Osmoza jest biernym przemieszczaniem się wody przez błonę selektywnie przepuszczalną zgodnie z gradientem potencjału wody.
W prostym układzie dwóch roztworów znajdujących się pod takim samym ciśnieniem woda przepływa zgodnie z gradientem potencjału wody: od roztworu o wyższym potencjale do roztworu o niższym potencjale.
Transport wody w roślinie
W obrębie rośliny wyróżnia się dwa rodzaje transportu wody i rozpuszczonych w niej soli mineralnych:
transport krótkodystansowy (od komórki do komórki),
transport długodystansowy (w elementach przewodzących drewna).

Film dostępny pod adresem /preview/resource/R14VoqbQwtI10
Film nawiązujący do treści materiału pod tytułem "Transport wody i soli mineralnych w roślinie".
Woda pobierana jest z roztworu glebowego na zasadzie osmozy, zgodnie z gradientem potencjału wody. Transport krótkodystansowy w poprzek korzenia zachodzi trzema szlakami:
symplastycznym - przez protoplasty komórek połączone plazmodesmami;
apoplastycznym - przez ściany komórkowe i przestwory międzykomórkowe;
transmembranowym - woda i jony wielokrotnie pokonują błonę komórkową, wychodząc z jednej komórki i wchodząc do kolejnej.
Transport długodystansowy wody zachodzi w elementach przewodzących drewna - cewkach i naczyniach. Odbywa się dzięki gradientowi potencjału wody, w kierunku od wyższego do niższego potencjału wody. Gradient ten obejmuje układ gleba–roślina–atmosfera.

Wyróżnia się dwa mechanizmy przemieszczające wodę w ciągach przewodzących:
siłę transpiracyjną (siłę ssącą liści), która jest głównym mechanizmem translokacji wody w ksylemie,
parcie korzeniowe, które odgrywa znaczącą rolę w przypadku ograniczonego działania siły transpiracyjnej.
Sprawne przemieszczanie się wody w elementach przewodzących ksylemu wspomagają siły kohezji i adhezji, zapewniające utrzymanie ciągłego słupa wody w elementach przewodzących drewna i przeciwdziałające jego grawitacyjnemu opadaniu.
Transpiracja i jej rodzaje
Transpiracja polega na parowaniu wody z powierzchni nadziemnych rośliny.
- Nazwa kategorii: Czynniki wpływające [br]na intensywność transpiracji
- Nazwa kategorii: Czynniki wewnętrzne
- Nazwa kategorii: wielkość systemu[br] korzeniowego
- Nazwa kategorii: liczba [br]i rozmieszczenie [br]aparatów [br]szparkowych
- Nazwa kategorii: powierzchnia liści
- Nazwa kategorii: przetchlinki
- Nazwa kategorii: kutykula Koniec elementów należących do kategorii Czynniki wewnętrzne
- Nazwa kategorii: Czynniki zewnętrzne
- Nazwa kategorii: temperatura
- Nazwa kategorii: wiatr
- Nazwa kategorii: ilość wody [br]w glebie
- Nazwa kategorii: natężenie światła
- Nazwa kategorii: ciśnienie
- Nazwa kategorii: wilgotność [br]względna [br]powietrza Koniec elementów należących do kategorii Czynniki zewnętrzne
- Elementy należące do kategorii Czynniki wpływające [br]na intensywność transpiracji
- Elementy należące do kategorii Czynniki wewnętrzne
- Elementy należące do kategorii Czynniki zewnętrzne
Bilans wodny rośliny
Bilans wodny rośliny jest różnicą między ilością pobieranej a ilością traconej wody. Wyróżnia się:
bilans zrównoważony - gdy pobieranie wody równoważy jej utratę;
bilans dodatni - gdy pobieranie przewyższa utratę wody;
bilans ujemnywystępuje, gdy utrata wody przewyższa pobieranie.
Krótkotrwały bilans ujemny może występować w ciągu dnia i nie musi prowadzić do trwałych uszkodzeń. Długotrwały deficyt powoduje jednak spadek turgoru, więdnięcie, ograniczenie fotosyntezy i wzrostu, a w skrajnych przypadkach obumieranie komórek.
Susza klimatyczna wynika z niedostatecznej ilości opadów, co prowadzi do zmniejszenia zasobów wody w środowisku.
Susza fizjologiczna występuje wtedy, gdy woda znajduje się w podłożu, ale roślina nie może jej pobrać albo jej pobieranie jest silnie ograniczone.
Przyczynami suszy fizjologicznej mogą być, m.in.:
wysokie zasolenie podłoża, obniżające jego potencjał wody;
zamarznięcie wody glebowej;
niska temperatura ograniczająca aktywność metaboliczną korzeni;
niedobór tlenu w zalanej lub nadmiernie zagęszczonej glebie.
Stres wodny występuje, gdy niedobór wody zaburza funkcjonowanie rośliny. Jego nasilenie zależy od wielkości deficytu, szybkości odwadniania i czasu jego trwania. Skutkami stresu wodnego są między innymi:
utrata turgoru i więdnięcie;
zamknięcie aparatów szparkowych, a w konsekwencji ograniczenie pobierania CO₂ i fotosyntezy;
zahamowanie wzrostu;
przyspieszone starzenie i opadanie liści;
uszkodzenia błon oraz białek przy silnym odwodnieniu.
Rośliny chronią się przed odwodnieniem przez:
zamykanie aparatów szparkowych;
ograniczanie powierzchni liści;
rozwój rozległego lub głębokiego systemu korzeniowego;
wytwarzanie grubej kutykuli, włosków i zagłębionych szparek;
gromadzenie wody w tkankach;
dostosowanie osmotyczne, czyli gromadzenie substancji osmotycznie czynnych, które obniżają potencjał osmotyczny komórek i ułatwiają utrzymanie wody.
W reakcji na suszę szczególnie istotny jest kwas abscysynowy, który uczestniczy w zamykaniu aparatów szparkowych i uruchamianiu innych mechanizmów obronnych.
Gospodarka mineralna roślin
Odżywianie mineralne roślin
Odżywianie mineralne roślin obejmuje pobieranie ze środowiska mineralnych składników pokarmowych, ich transport oraz wykorzystywanie w procesach metabolicznych. Rośliny lądowe pobierają większość składników mineralnych z roztworu glebowego w postaci jonów, przede wszystkim za pośrednictwem korzeni.
Wśród mineralnych składników pokarmowych wyróżnia się:
makroelementy - potrzebne w stosunkowo dużych ilościach, stanowiące niż 0,01% suchej masy;
mikroelementy, potrzebne w bardzo małych ilościach, stanowiące mniej niż 0,01% suchej masy.
Do makroelementów należą: węgiel, wodór, tlen, azot, fosfor, siarka, potas, wapń i magnez. Do mikroelementów zalicza się: żelazo, mangan, bor, cynk, miedź, molibden, chlor i nikiel.
Jony dostępne dla roślin występują w roztworze glebowym lub są związane z ujemnie naładowanymi cząstkami mineralnymi i próchnicznymi tworzącymi kompleks sorpcyjny. Zatrzymuje on kationy, takie jak K⁺, Ca²⁺, Mg²⁺ i NH₄⁺.
Komórki korzenia wydzielają do gleby protony H⁺, które w procesie wymiany kationowej wypierają kationy z kompleksu sorpcyjnego do roztworu glebowego, skąd mogą zostać pobrane przez korzeń. Protony są transportowane na zewnątrz komórek przez H⁺-ATPazy, wykorzystujące energię ATP. Powstały gradient protonowy napędza transport innych jonów.
Woda oraz jony przemieszczają się przez korę pierwotną korzenia trzema szlakami: apoplastycznym (przez ściany komórkowe i przestwory międzykomórkowe, symplastycznym (przez cytoplazmę komórek połączonych plazmodesmami) oraz transmembranowym (przez błony kolejnych komórek).
W endodermie szlak apoplastyczny zostaje zablokowany przez pasemka Caspary’ego, przez co woda i jony przemieszczające się apoplastem muszą przekroczyć błony komórkowe endodermy i przejść do symplastu. Dzięki temu endoderma selektywnie kontroluje dopływ jonów do elementów przewodzących ksylemu.

Film dostępny pod adresem /preview/resource/R1JWYykeLHL76
Film nawiązujący do substancji pokarmowych roślin.
Rola grzybów i mikroorganizmów glebowych w odżywianiu mineralnym roślin
Grzyby a odżywianie mineralne roślin
Mikoryza jest rodzajem mutualizmu między grzybem a korzeniem rośliny, zazwyczaj korzystnym dla obu partnerów. Grzybnia zwiększa obszar gleby, z którego pobierane są woda i jony mineralne. Roślina przekazuje grzybowi związki organiczne wytworzone w fotosyntezie.
W ektomikoryzie strzępki grzyba nie wnikają do wnętrza żywych komórek grzyba rosnąc między komórkami kory pierwotnej. Na powierzchni korzenia grzybnia tworzy mufkę.
W endomikoryzie (mikoryzie arbuskularnej) strzępki grzyba wnikają przez ściany komórek kory pierwotnej i tworzą silnie rozgałęzione arbuskule. Są one miejscem intensywnej wymiany substancji między grzybem a rośliną.
Bakterie a odżywianie mineralne roślin
Rośliny nie mogą bezpośrednio wykorzystywać azotu cząsteczkowego N₂ z atmosfery. Pobierają przede wszystkim jony NH₄⁺ i NO₃⁻. Ich dostępność jest związana z aktywnością mikroorganizmów glebowych.
Amonifikacjapolega na przekształcaniu azotu zawartego w związkach organicznych w amoniak, który po przekształceniu w jony amonowe NH₄⁺ może być pobierany i wykorzystywany przez rośliny. Proces może zachodzić zarówno w warunkach tlenowych, jak i beztlenowych.
Nitryfikacjajest procesem tlenowym, w którym jony amonowe są utleniane do azotanów(III) NO₂⁻, a te następnie do azotanów(V) NO₃⁻. Wytworzone jony azotanowe są pobierane i wykorzystywane przez rośliny.
Wiązanie azotu polega na redukcji atmosferycznego N₂ do amoniaku przez enzym - nitrogenazę. U bakterii brodawkowych żyjących w symbiozie z roślinami bobowatymi enzym ten działa w brodawkach korzeniowych, gdzie leghemoglobina pomaga utrzymać niskie stężenie tlenu hamującego aktywność tego enzymu. Wytworzony w wyniku wiązania azotu amoniak, po przekształceniu w jony amonowe jest wykorzystywany przez rośliny.
Samożywność roślin
Przebieg fotosyntezy CIndeks dolny 33
Fotosynteza jest procesem anabolicznym, w którym energia światła zostaje przekształcona w energię chemiczną wykorzystywaną do redukcji CO₂ i syntezy związków organicznych. Tlen uwalniany podczas fotosyntezy tlenowej pochodzi z wody.
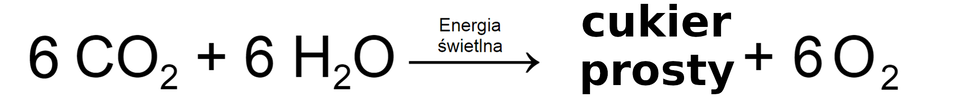
Fotosynteza jest procesem dwuetapowym. Produktem fazy jasnej jest tzw. siła asymilacyjna (ATP oraz NADPH + HIndeks górny ++), która wykorzystywana jest w fazie ciemnej do redukcji COIndeks dolny 22 i syntezy cukrów.
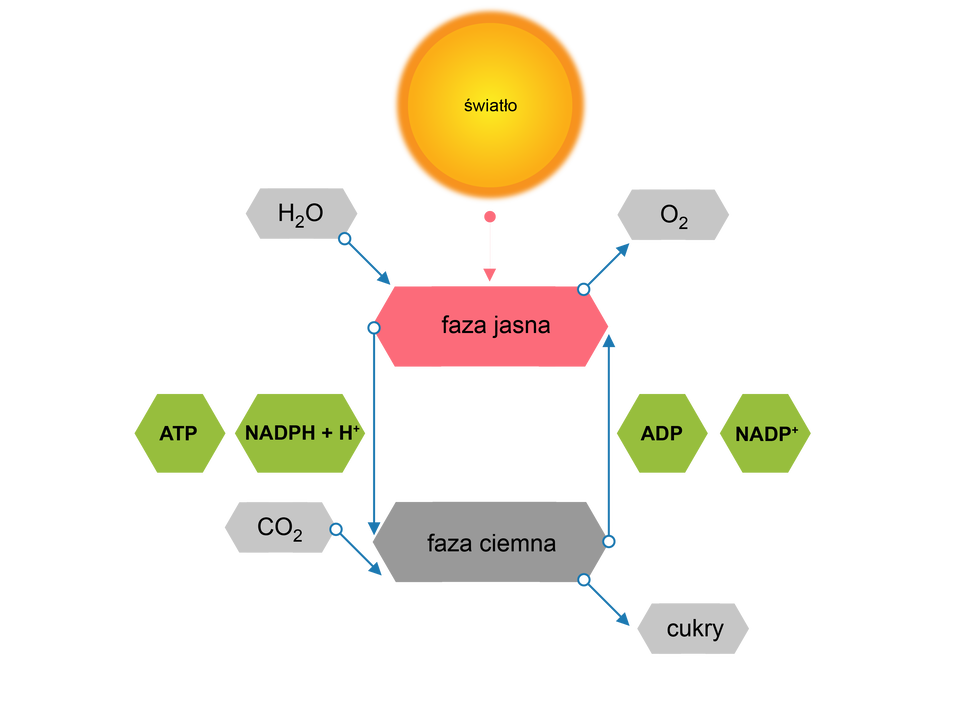
W fazie jasnej może zachodzić fosforylacja niecykliczna, w której uczestniczą oba fotosystemy (PSI i PSII), lub fosforylacja cykliczna, przebiegająca wyłącznie z udziałem fotosystemu I (PSI).
W fosforylacji niecyklicznej światło wzbudza elektrony w fotosystemie II. Ubytek elektronów uzupełnia fotoliza wody, w wyniku której powstają elektrony, protony i tlen. Elektrony z fotosystemu II przepływają przez łańcuch przenośników do fotosystemu I, a ich transportowi towarzyszy powstawanie gradientu protonowego, który napędza syntezę ATP. Następnie elektrony z fotosystemu I są przekazywane na NADP⁺, w wyniku czego powstaje NADPH + HIndeks górny ++.
W fosforylacji cyklicznej elektrony z fotosystemu I wracają do niego przez łańcuch przenośników. Ich przepływ powoduje powstanie gradientu protonowego i syntezę ATP. Nie zachodzi fotoliza wody, dlatego nie powstają tlen ani NADPH.
Reakcje cyklu Calvina zachodzą w stromie chloroplastu i nie wymagają bezpośrednio światła, ale korzystają z ATP i NADPH wytworzonych w fazie zależnej od światła. Cykl Calvina obejmuje: karboksylację, redukcję i regenerację RuBP.
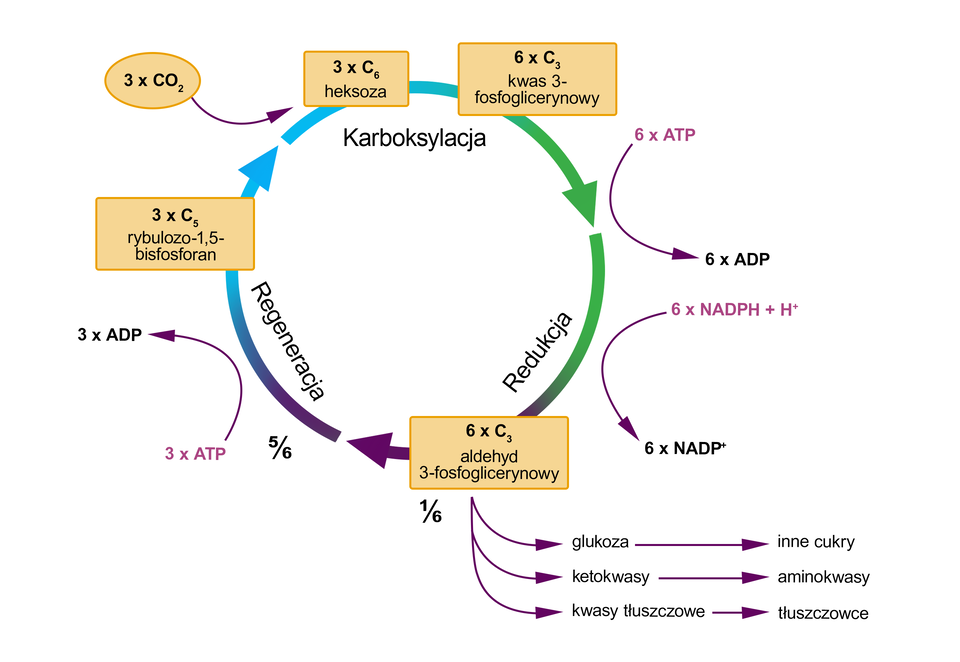
Rośliny, u których asymilacja COIndeks dolny 22 zachodzi wyłącznie w cyklu Calvina, nazywane są roślinami CIndeks dolny 33a rodzaj fotosyntezy, którą przeprowadzają - fotosyntezą CIndeks dolny 33. Do roślin CIndeks dolny 33 należy większość gatunkówstrefy umiarkowanej.
Przebieg fotosyntezy CIndeks dolny 44 i CAM
W fotosyntezie CIndeks dolny 44 (np. kukurydza, trzcina cukrowa, sorgo) i CAM (np. kaktusy, aloesy, agawy) występuje podwójne wiązanie dwutlenku węgla.
U roślin CIndeks dolny 44 pierwotne wiązanie COIndeks dolny 22 i cykl Calvina są rozdzielone przestrzennie: pierwotna asymilacja zachodzi w mezofilu liścia, wtórna - w komórkach pochwy okołowiązkowej.
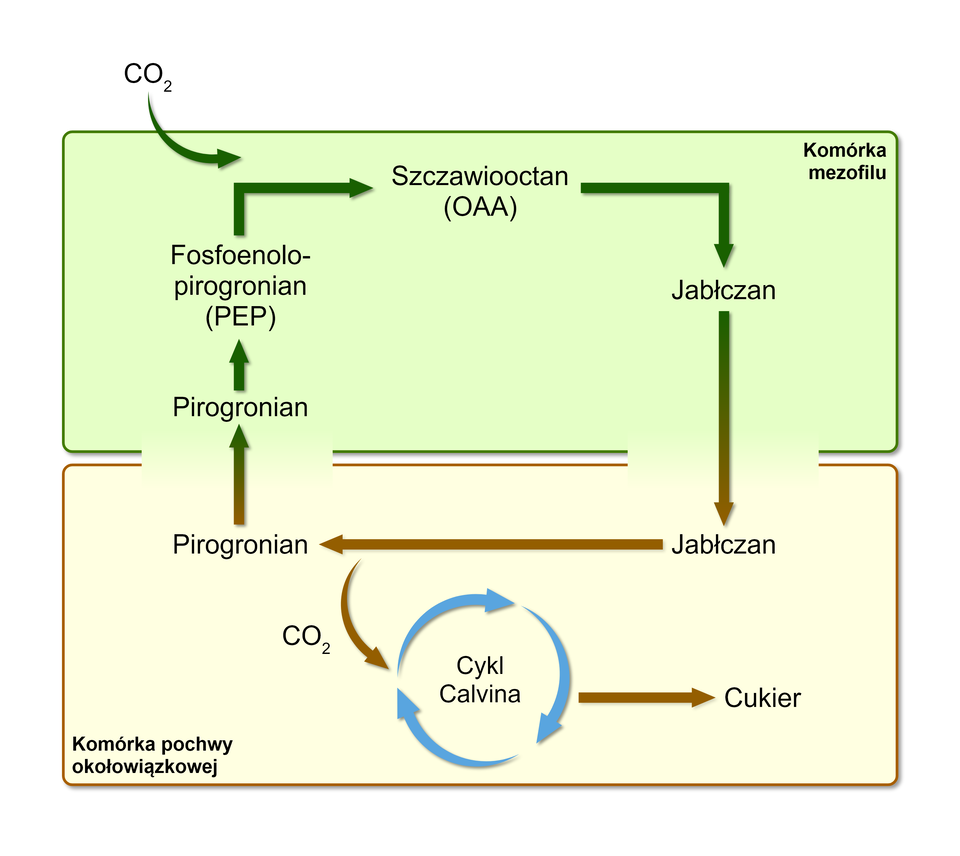
W pierwotnym wiązaniu PEP‑karboksylaza przyłącza wodorowęglan HCOIndeks dolny 33Indeks górny --, będący formą nieorganicznego węgla, do fosfoenolopirogronianu (PEP). Powstaje szczawiooctan, który jest przekształcany zwykle w jabłczan. Po dekarboksylacji jabłczanu uwalnia się COIndeks dolny 22 i zostaje włączony w cykl Calvina.
U roślin CAM pierwotne wiązanie COIndeks dolny 22 i cykl Calvina zachodzą w tych samych komórkach, ale w różnych porach doby.
W nocy aparaty szparkowe roślin typu CAM są otwarte. Wówczas rośliny te pobierają dwutlenek węgla, który w cytoplazmie komórek miękiszu asymilacyjnego jest przyłączany do związku trójwęglowego – fosfoenolopirogronianu (PEP). Następnie szczawiooctan ulega redukcji do jabłczanu, który gromadzony jest w wakuoli. W dzień aparaty szparkowe roślin typu CAM są zamknięte, jabłczan ulega dekarboksylacji, a uwolniony COIndeks dolny 22 jest włączany w cykl Calvina.
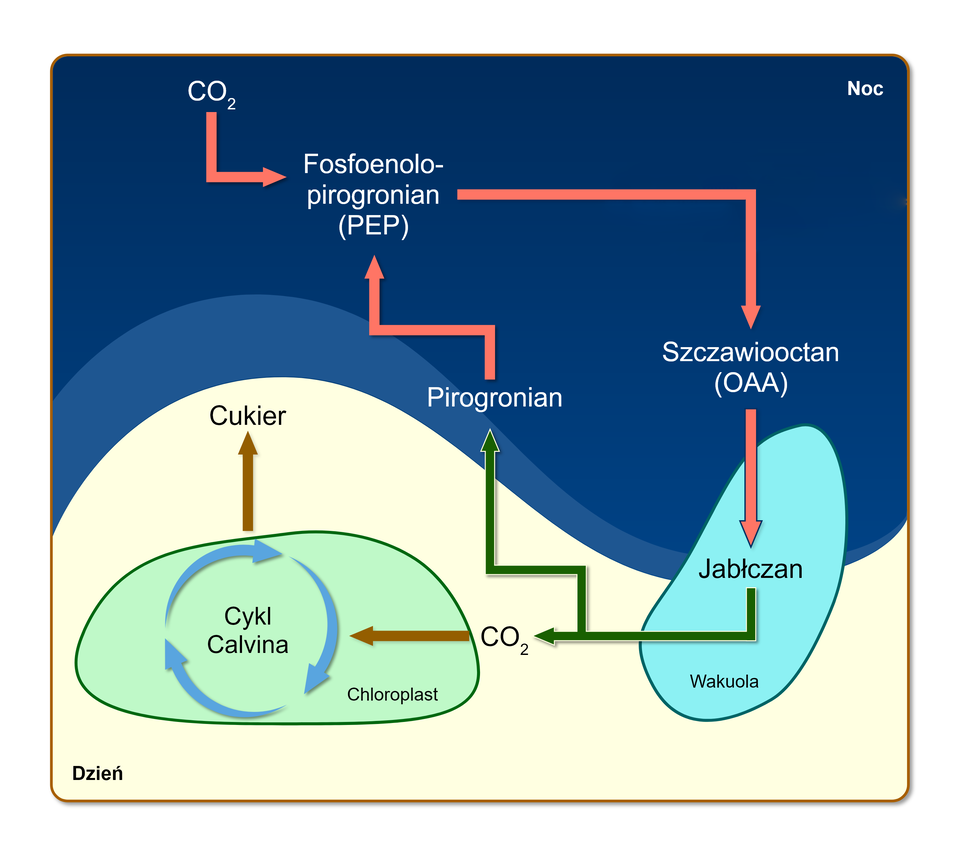
Fotosynteza typu CIndeks dolny 44 i CAMumożliwia przeprowadzanie asymilacji COIndeks dolny 22 przy częściowo lub całkowicie zamkniętych szparkach, co jest adaptacją do życia w klimacie suchym i gorącym.
Czynniki wpływające na intensywność fotosyntezy
Intensywność fotosyntezy zależy jednocześnie od wielu czynników. Zgodnie z zasadą czynnika ograniczającego tempo procesu wyznacza w danej chwili ten czynnik, którego dostępność najbardziej odbiega od optimum.
Światło– wzrost natężenia zwiększa fotosyntezę do punktu wysycenia; zbyt silne światło może powodować fotoinhibicję. Punkt kompensacyjnyto natężenie światła, przy którym bilans wymiany CO₂ wynosi zero.
Temperatura– wpływa głównie na aktywność enzymów; optimum zależy od gatunku i typu fotosyntezy; dla wielu roślin mieści się w zakresie 20‑30Indeks górny ooC.
Woda– jej niedobór powoduje zamykanie aparatów szparkowych i ogranicza dopływ COIndeks dolny 22.
COIndeks dolny 22 – zwiększanie stężenia może podnosić intensywność fotosyntezy do momentu, gdy czynnikiem ograniczającym stanie się światło, temperatura, zdolność enzymatyczna albo dostępność składników mineralnych.
Czynniki wewnętrzne– m.in. zawartość barwników fotosyntetycznych, liczba i aktywność chloroplastów, aktywność enzymów, budowa i wiek liścia oraz stan jego uwodnienia.
Transport produktów fotosyntezy w roślinie
Produkty fotosyntezy są transportowane przez floem, czyli łyko. U okrytonasiennych elementami przewodzącymi są człony rurek sitowych, współpracujące z komórkami przyrurkowymi.
Donor jest organem eksportującym asymilaty. Najczęściej jest nim dojrzały liść albo organ spichrzowy uruchamiający zapasy.
Akceptor jest organem importującym cukry w celu ich zużycia lub magazynowania. Akceptorami są między innymi: merystemy, młode liście, korzenie, kwiaty, rozwijające się nasiona i owoce, organy spichrzowe w okresie gromadzenia zapasów.
Transport asymilatów obejmuje trzy procesy: załadunek łyka, przepływ przez rurki sitowe i rozładunek łyka. Głównym cukrem transportowanym w łyku jest sacharoza.
Załadunek łyka może zachodzić symplastycznie przez plazmodesmy lub apoplastycznie, z przekroczeniem błony komórkowej. W załadunku apoplastycznym, H⁺-ATPaza zużywa ATP do wypompowania protonów. Powrót H⁺ zgodnie z gradientem napędza symport H⁺ i sacharozy.
Załadunek sacharozy obniża potencjał wody w elementach przewodzących floemu. Woda napływa osmotycznie z ksylemu, zwiększając ciśnienie hydrostatyczne w rurkach sitowych i powodując przepływ znajdującego się w nim roztworu.
Rozładunek łyka może zachodzić symplastycznie (biernie) lub apoplastycznie (z wykorzystaniem energii z hydrolizy ATP i gradientu protonów). W akceptorze sacharoza jest rozładowywana i zużywana lub magazynowana. Potencjał wody wzrasta, woda odpływa, a ciśnienie maleje.
Wzrost i rozwój roślin
Ontogeneza, czyli rozwój osobniczy, obejmuje u roślin następujące okresy: zarodkowy, wegetatywny, generatywny oraz starzenia się i obumierania.
Na rozwój rośliny składają się:
wzrost, czyli nieodwracalne zwiększanie rozmiarów i masy organizmu wskutek podziałów oraz powiększania się komórek;
różnicowanie, podczas którego komórki uzyskują odmienną budowę i funkcje, tworząc tkanki i organy;
morfogeneza, czyli kształtowanie budowy i formy organizmu.
Dzięki obecności tkanek merystematycznych (twórczych) wiele roślin zachowuje przez całe życie zdolność do wzrostu.
Fitohormony
Fitohormony są naturalnymi związkami organicznymi, które w bardzo małych stężeniach regulują procesy wzrostu, rozwoju i reakcje roślin na środowisko.
Fitohormony:
mogą działać w miejscu powstania lub po przetransportowaniu do innych tkanek;
ten sam hormon może wywoływać odmienne, a nawet przeciwstawne skutki w różnych organach.
Do najważniejszych fitohormonów należą: auksyny, cytokininy, gibereliny, kwas abscysynowy i etylen.
Film dostępny pod adresem /preview/resource/R1803cNtvagnv
Film nawiązujący do treści materiał dotyczący regulatorów wzrostu i rozwoju roślin.
Dominacja wierzchołkowa
Dominacja wierzchołkowa jest to hamowanie wzrostu pąków bocznych przez pąk szczytowy pędu głównego.
Główny mechanizm dominacji wierzchołkowej opiera się na:
antagonistycznym działaniu dwóch fitohormonów: auksyn i cytokinin;
konkurencji o zasoby pokarmowe między pąkiem szczytowym, a pąkami bocznymi.
Auksyny, produkowane w wierzchołku pędu, hamują rozwój pąków bocznych i ograniczają transport oraz działanie cytokinin, które pobudzają wzrost tych pąków. Ponadto wierzchołek pędu, jako główny odbiorca substancji odżywczych, zużywa większość cukrów i soli mineralnych. W efekcie pąki boczne otrzymują ich zbyt mało, co ogranicza ich rozwój.
Kwitnienie
Kwitnienie jest przejściem merystemu pędu z programu rozwoju wegetatywnego do generatywnego.
Zdolność do kwitnienia zależy od czynników:
wewnętrznych, np. wieku, fitohormonów;
zewnętrznych, szczególnie długości dnia i nocy oraz temperatury.
Rośliny kwitnące raz w życiu nazywa się monokarpicznymi, a rośliny kwitnące wielokrotnie polikarpicznymi. Nie wszystkie rośliny monokarpiczne są jednoroczne lub dwuletnie. Niektóre rośliny wieloletnie także kwitną tylko raz, a następnie obumierają.
Fotoperiodyzm
Fotoperiod to długość okresów światła i ciemności w cyklu dobowym, a fotoperiodyzm oznacza reakcję organizmu na ich długość i następstwo.
Ze względu na wpływ fotoperiodu na zakwitanie wyróżnia się:
rośliny dnia krótkiego, które kwitną, gdy nieprzerwany okres ciemności jest dłuższy od wartości krytycznej;
rośliny dnia długiego, które kwitną, gdy noc jest krótsza od wartości krytycznej;
rośliny fotoperiodycznie obojętne, u których indukcja kwitnienia nie zależy w istotny sposób od długości dnia.
Bodziec fotoperiodyczny jest odbierany w liściach. Po wystąpieniu warunków sprzyjających kwitnieniu w liściu powstaje czynnik kwitnienia - florigen, który transportowany jest do merystemu pędu, gdzie inicjuje jego przekształcenie w merystem kwiatowy.
Fitochrom jest fotoreceptorem białkowym zawierającym chromofor. Występuje w dwóch wzajemnie przekształcalnych formach:
PIndeks dolny rr, która najskuteczniej pochłania światło czerwone;
PIndeks dolny frfr, która najskuteczniej pochłania światło dalekiej czerwieni.
Światło czerwone przekształca PIndeks dolny rr w PIndeks dolny frfr, a daleka czerwień przekształca PIndeks dolny frfr w PIndeks dolny rr. W ciemności ilość PIndeks dolny frfr stopniowo maleje wskutek przemian i degradacji. Stosunek PIndeks dolny rr do PIndeks dolny frfr stanowi sygnał wpływający na inicjację kwitnienia u roślin dnia długiego i dnia krótkiego.
Wernalizacja
Wernalizacja, czyli jarowizacja, jest nabywaniem zdolności do kwitnienia pod wpływem odpowiednio długiego okresu niskiej temperatury.
Chłód powoduje trwałe zmiany regulacji ekspresji genów, w tym epigenetyczne ograniczenie aktywności genów hamujących kwitnienie.
Formy ozime wysiewa się zwykle jesienią i wymagają one okresu chłodu do prawidłowego przejścia w rozwój generatywny. Formy jare mogą zakończyć cykl po wysiewie wiosennym bez takiego wymogu.
Spoczynek i kiełkowanie nasion
Nasiono powstaje z zalążka i zawiera zarodek, substancje zapasowe oraz łupinę nasienną. Jest strukturą służącą rozmnażaniu, przetrwaniu niekorzystnego okresu i rozprzestrzenianiu roślin.
Wyróżnia się dwa rodzaje spoczynku nasion:
spoczynek bezwzględny, gdy nasiono nie kiełkuje mimo sprzyjających warunków zewnętrznych z powodu właściwości zarodka, łupiny lub obecności inhibitorów;
spoczynek względny, gdy zdolne do kiełkowania nasiono nie kiełkuje z powodu braku wody, tlenu, odpowiedniej temperatury lub innych wymaganych warunków.
Kiełkowanie obejmuje całokształt przemian metabolicznych zachodzących wewnątrz nasiona, w wyniku których dochodzi do aktywacji zarodka. Przemiany te dostarczają energii i substratów niezbędnych do prawidłowego wzrostu siewki.
Kiełkowanie nasion składa się z kilku faz, ściśle ze sobą powiązanych i zachodzących na siebie:
imbibicji (pęcznienia), w której następuje intensywne pobierany wody przez suche tkanki nasiona;
fazy katabolicznej, w której przeważają procesy hydrolizy substancji zapasowych (skrobi, tłuszczów i białek);
fazy anabolicznej, w której przeważają procesy syntezy nowych związków organicznych (w tym białek), a komórki osi zarodkowej (ciała zarodka bez liścieni) zaczynają się wydłużać i dzielić.
Do kiełkowania nasion niezbędne są: woda, odpowiednia temperatura oraz tlen. Do czynników wpływających na kiełkowanie niektórych roślin należą również światło i substancje mineralne.
Wyróżnia się kiełkowanie nadziemne (epigeiczne) i podziemne (hypogeiczne).
Powstawanie i rozwój owoców
Owoc rośliny okrytonasiennej powstaje zwykle z zalążni, a nasiona z zalążków. W tworzeniu niektórych owoców uczestniczą również inne części kwiatu.
Rozwój zalążni zaczyna być pobudzany po zapyleniu, ale zasadniczy sygnał do trwałego rozwoju typowego owocu jest zwykle związany z zapłodnieniem i rozwijającymi się nasionami. Nasiona wytwarzają auksyny, gibereliny i cytokininy, które pobudzają podziały oraz powiększanie komórek owocni.
Partenokarpiajest rozwojem owocu bez zapłodnienia, prowadzącym do powstania owocu beznasiennego. Może występować naturalnie albo zostać wywołana przez zastosowanie auksyn lub giberelin.
Dojrzewanie owoców suchych związane jest z wysychaniem i twardnieniem owocni, która stanowi ochronę mechaniczną dla nasion rozsiewanych przez wiatr lub wodę. W przypadku owoców mięsistych proces dojrzewania związany jest z powstawaniem soczystej i miękkiej owocni, która stanowi czynnik wabiący zwierzęta.
Owoce klimakterycznewykazują podczas dojrzewania wzrost intensywności oddychania i produkcji etylenu. Należą do nich między innymi jabłka, banany, gruszki, pomidory i awokado. Mogą kontynuować dojrzewanie po oddzieleniu od rośliny.
Wrażliwość i ruchy roślin
Ruchy roślin są przejawem ich wrażliwości, czyli zdolności do odbierania bodźców i reagowania na nie.
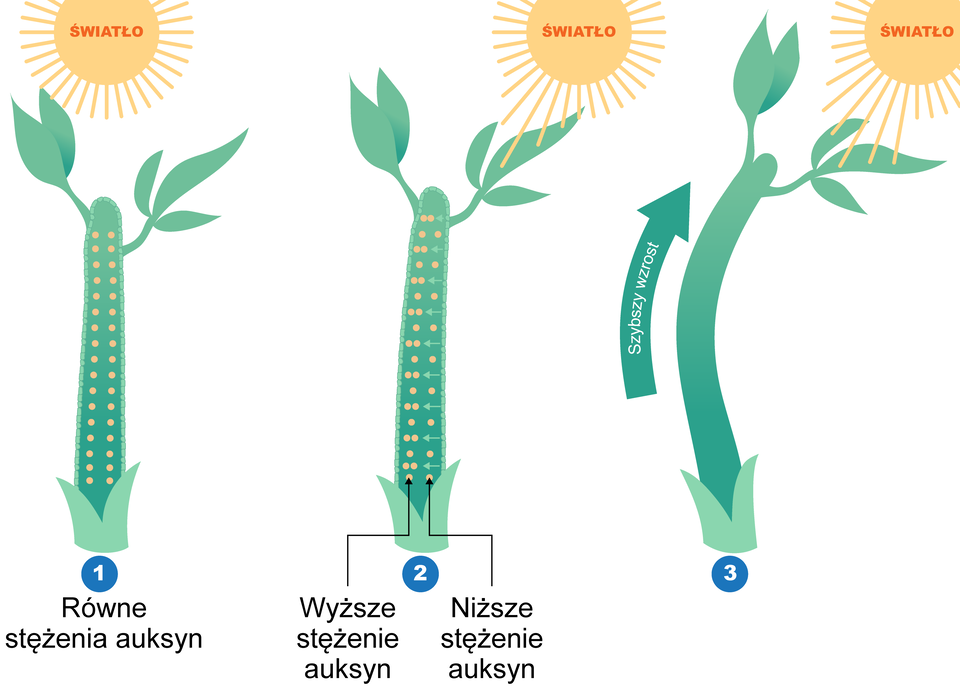
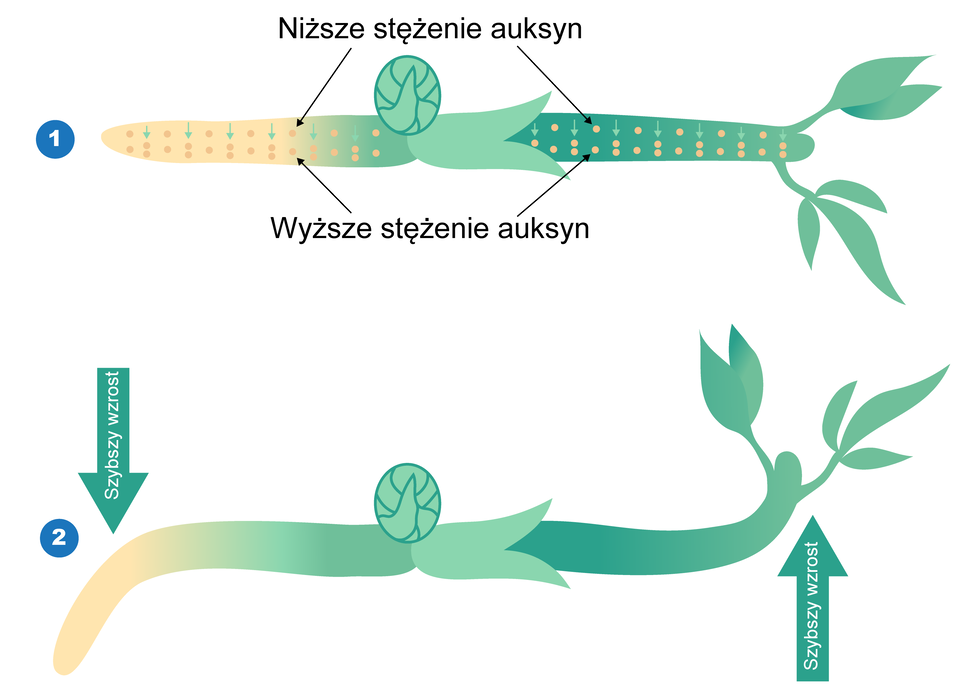
Tropizmy są kierunkowymi reakcjami wzrostowymi, których kierunek zależy od kierunku bodźca:
tropizm dodatni zachodzi w stronę bodźca;
tropizm ujemny zachodzi w stronę przeciwną.
Do tropizmów należą między innymi fototropizm, grawitropizm, chemotropizm i tigmotropizm.
Nastie są ruchami, których kierunek nie zależy od kierunku działania bodźca. Bodziec wyzwala określoną przez budowę organu reakcję. Nastie mogą być:
wzrostowe, związane z nierównomiernym wzrostem różnych stron organu;
turgorowe, związane z odwracalnymi zmianami turgoru komórek motorycznych.
W nastiach turgorowych bodziec powoduje otwarcie lub zamknięcie kanałów jonowych, co prowadzi do przemieszczania jonów K⁺ i Cl⁻. Zmienia to potencjał wody komórek, powodując osmotyczny przepływ wody, zmianę turgoru i w efekcie ruch organu.
Ruch aparatów szparkowych
Światło, szczególnie niebieskie, aktywuje pompy protonowe błony komórek szparkowych. Powstający gradient elektrochemiczny sprzyja napływowi K⁺ oraz gromadzeniu anionów, w tym jabłczanu i Cl⁻. Obniżenie potencjału wody powoduje osmotyczny napływ wody, wzrost turgoru i otwarcie szparki.
Podczas suszy ABA uruchamia wypływ anionów i K⁺. Potencjał wody wzrasta, woda wypływa z komórek szparkowych, turgor spada i szparka się zamyka.