Podsumowanie wątku 16
Streszczenie wątku 16
Kwasy nukleinowe
Kwasy nukleinowe są polimerami zbudowanymi z nukleotydów. Nukleotyd zawiera:
zasadę azotową;
cukier pięciowęglowy;
resztę fosforanową.

Budowa i funkcje DNA
DNA ma strukturę dwuniciową. Nukleotydy jednej nici DNA są połączone kowalencyjnymi wiązaniami 3′,5′-fosfodiestrowymi. Każda nić ma określoną polarność:
koniec 5′;
koniec 3′.
Sekwencję nukleotydów zapisuje się umownie w kierunku 5′→3′.
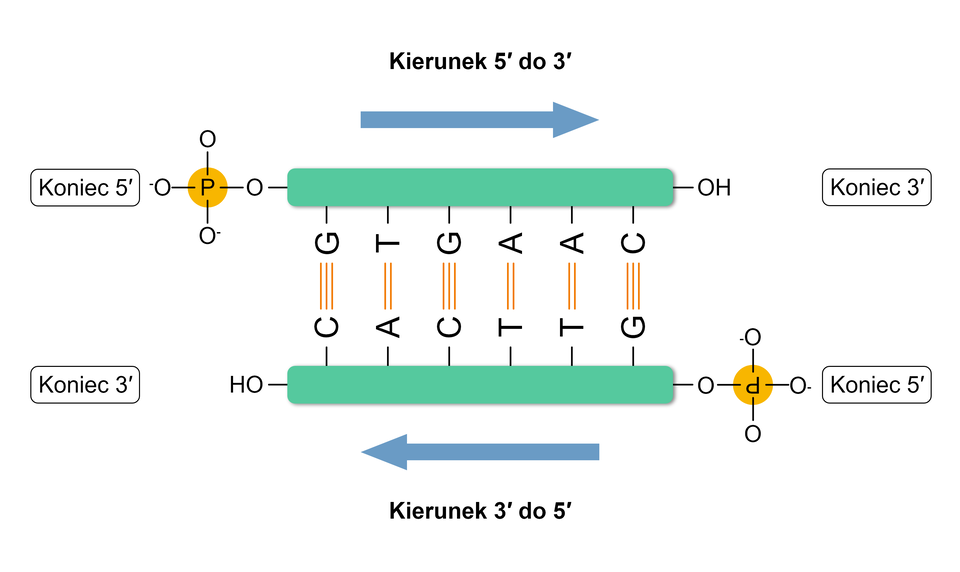
Adenina w jednej nici tworzy parę z tyminą drugiej nici, a guanina z cytozyną. Komplementarność powoduje, że sekwencja jednej nici pozwala odtworzyć sekwencję drugiej. Reguła Chargaffa dla dwuniciowego DNA mówi, że ilość adeniny jest równa ilości tyminy, a ilość guaniny ilości cytozyny.
DNA przechowuje informację o budowie RNA i łańcuchów polipeptydowych, może być kopiowany przed podziałem komórki i przekazywany komórkom potomnym.
Budowa, rodzaje i funkcje RNA
RNA jest najczęściej jednoniciowy, lecz wskutek parowania komplementarnych odcinków tej samej cząsteczki może tworzyć struktury drugorzędowe. Niektóre wirusy mają genom zbudowany z jednoniciowego albo dwuniciowego RNA.
Do najważniejszych rodzajów RNA należą:
mRNA, które przenosi informację wykorzystywaną podczas syntezy białka;
tRNA, które transportuje aminokwasy do rybosomu i rozpoznaje kodony mRNA;
rRNA, będący składnikiem rybosomów;
snRNA, uczestniczący m.in. w składaniu pre‑mRNA;
snoRNA, związany z obróbką i modyfikacją rRNA;
miRNA i siRNA, uczestniczące w regulacji ekspresji genów.
Replikacja DNA
Replikacja jest procesem kopiowania DNA przed podziałem komórki. Ma charakter semikonserwatywny.
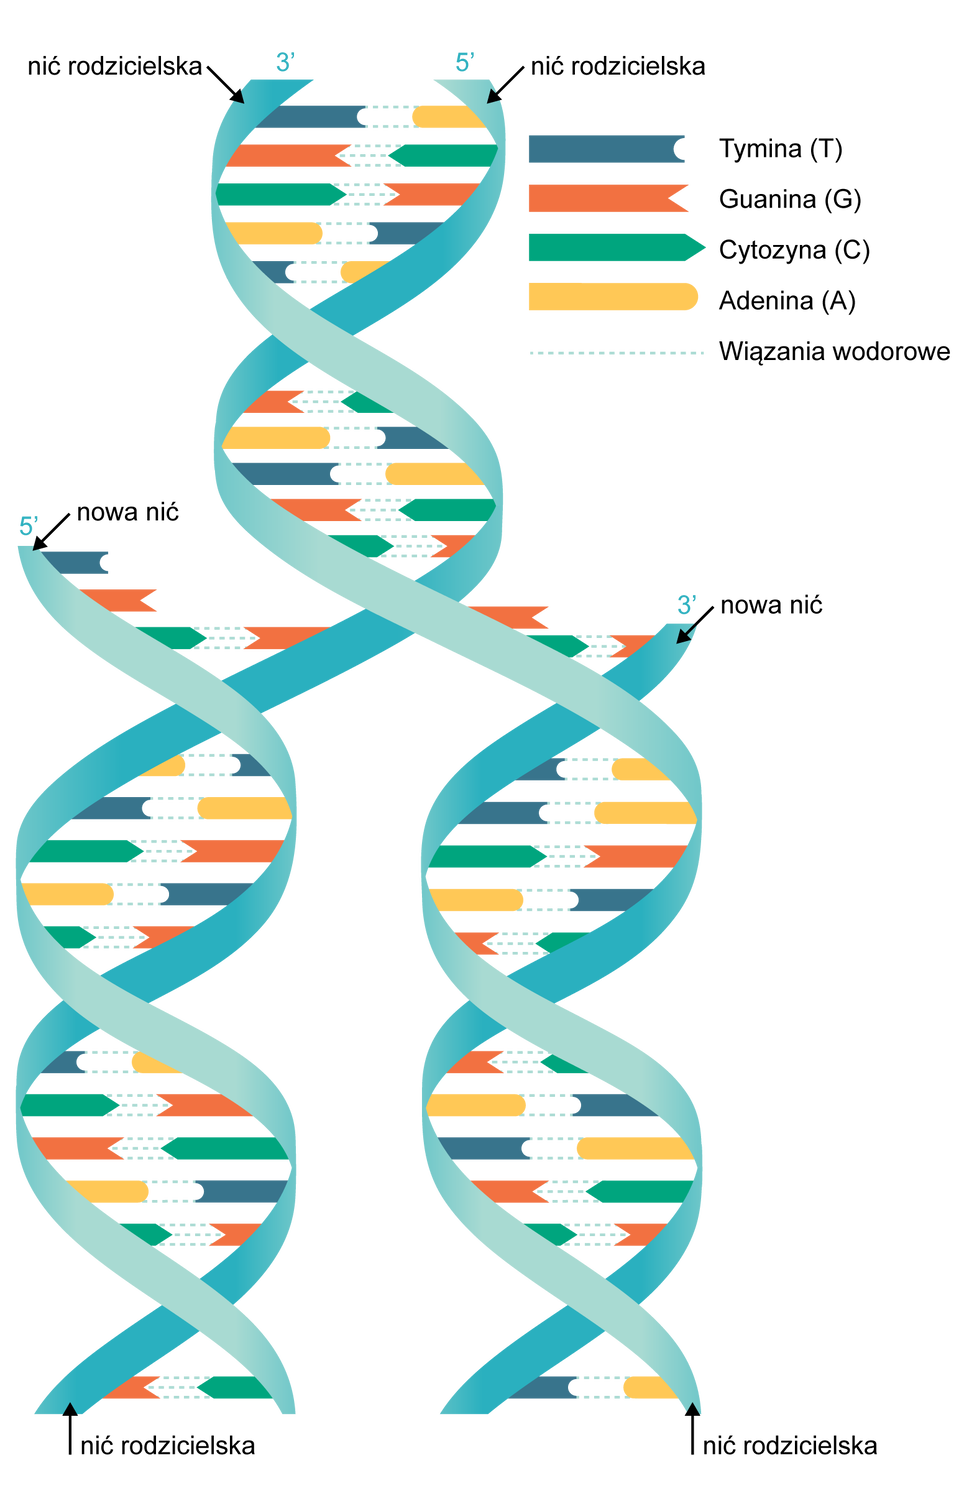
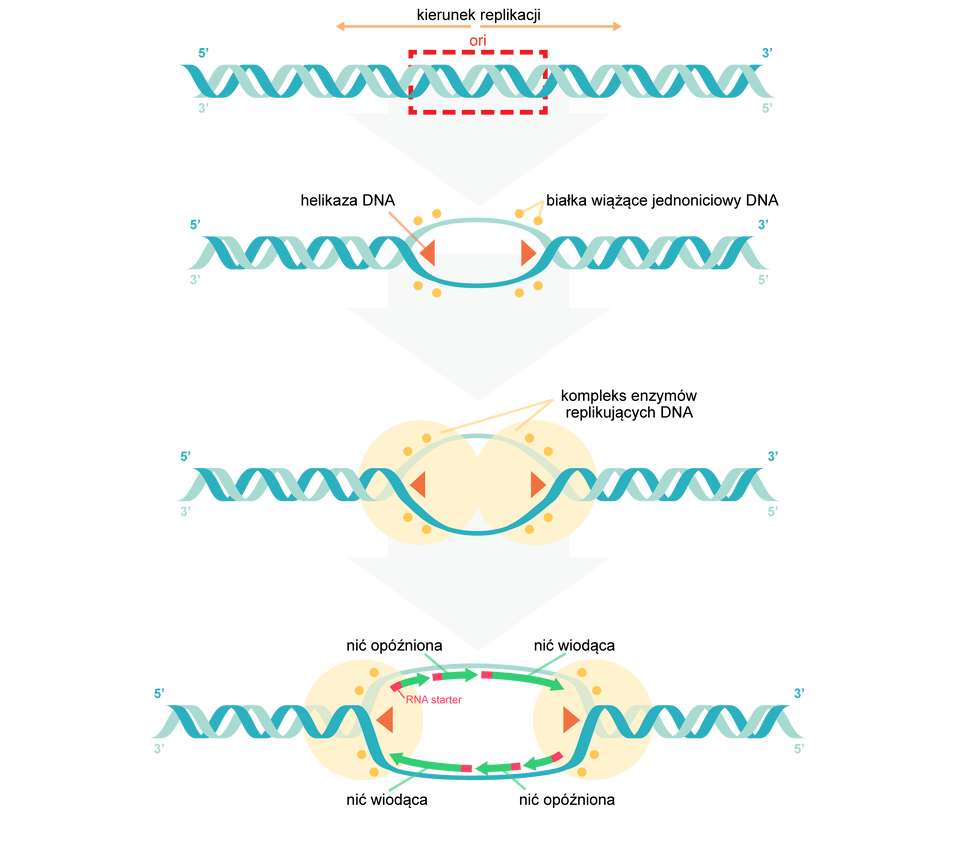
Inicjacja: helikaza rozrywa wiązania wodorowe między zasadami, rozdzielając nici DNA. Powstają widełki replikacyjne, a jednoniciowe fragmenty DNA są stabilizowane przez odpowiednie białka. U bakterii kolisty chromosom ma zazwyczaj jedno główne miejsce inicjacji, natomiast w liniowych chromosomach eukariontów replikacja rozpoczyna się równocześnie w wielu miejscach.
Elongacja: polimeraza DNA dołącza deoksyrybonukleotydy do wolnej grupy 3′-OH, dlatego nowa nić DNA powstaje wyłącznie w kierunku 5′→3′. Polimeraza DNA nie może rozpocząć syntezy bez startera. Krótki starter RNA jest syntetyzowany przez prymazę. Ze względu na antyrównoległość nici:
nić wiodąca jest syntetyzowana w sposób ciągły;
nić opóźnionajest syntetyzowana nieciągle, jako fragmenty Okazaki.
Startery RNA są następnie usuwane, luki uzupełniane DNA, a ligaza DNA łączy sąsiednie fragmenty nowo powstałych nici.
Terminacja: zakończenia syntezy nowych nici DNA i rozdzielenia powstałych cząsteczek DNA. W liniowych chromosomach eukariontów występuje problem skopiowania końca nici opóźnionej. Telomerazazawiera własną matrycę RNA i wydłuża końce chromosomów, umożliwiając zachowanie sekwencji telomerowych.
Polimerazy DNA i systemy naprawcze ograniczają liczbę błędów replikacji. Błąd, który nie zostanie naprawiony i utrwali się w DNA, staje się mutacją.
Gen i jego struktura
Gen jest odcinkiem materiału genetycznego, którego ekspresja prowadzi do powstania funkcjonalnego produktu, RNA albo polipeptydu. Gen obejmuje sekwencję transkrybowaną oraz elementy niezbędne do prawidłowej regulacji jego ekspresji. Wyróżnia się geny ciągłe, występujące u większości prokariontów i geny nieciągłe, typowe dla eukariontów.
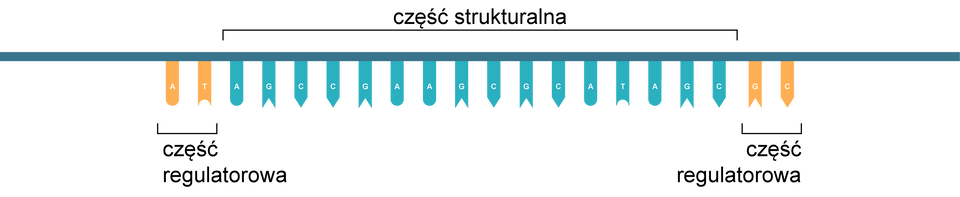
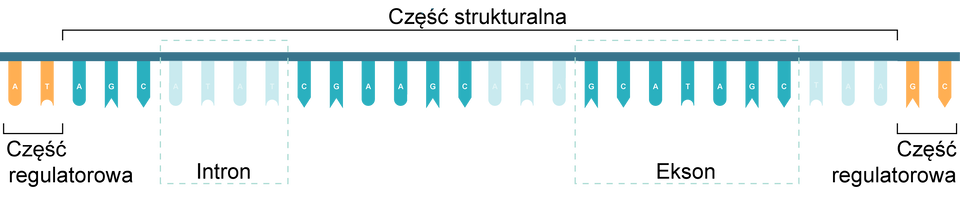
Ekson jest fragmentem genu zawierającym sekwencję kodującą, natomiast intron - sekwencję niekodującą.
Genomy i ich struktura
Genom to całkowity materiał genetyczny komórki lub organizmu.
Genom wirusów stanowi DNA albo RNA, jedno- lub dwuniciowy, liniowy lub kolisty. Genomy wirusowe są na ogół niewielkie, przez co znajdujące się w nim geny mogą na siebie zachodzić.
Genom bakterii obejmuje najczęściej kolisty chromosom zlokalizowany w nukleoidzie. Komórki mogą zawierać również plazmidy. Genomy bakteryjne są zwarte, ale zawierają nie tylko sekwencje kodujące, lecz również promotory, terminatory, sekwencje regulatorowe i obszary międzygenowe.
Genom eukariontów obejmuje genom jądrowy i mitochondrialny, a u roślin oraz protistów roślinopodobnych również genom plastydowy.
Jądrowe DNA jest liniowe i związane z białkami, w tym białkami histonowymi, tworząc chromatynę. Podstawową jednostką upakowania chromatyny jest nukleosom, w którym DNA owija się wokół oktameru histonowego. Luźniej upakowana chromatyna jest nazywana euchromatyną, a silnie skondensowana heterochromatyną.
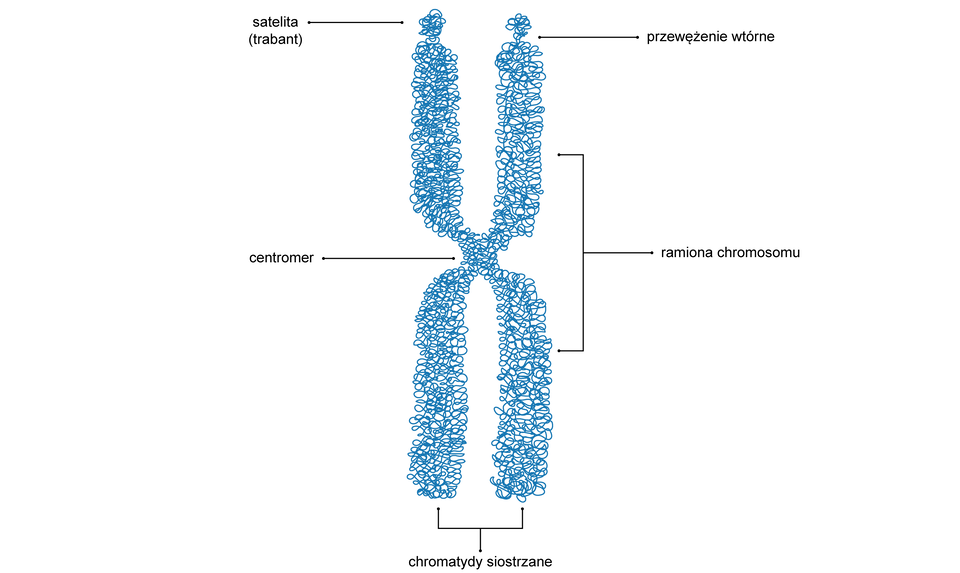
Chromosom eukariotyczny przed replikacją zawiera jedną cząsteczkę DNA, a po replikacji dwie chromatydy, z których każda zawiera jedną cząsteczkę DNA. Chromatydy są połączone w centromerze, w którym powstaje kinetochor odgrywający zasadniczą rolę w rozdziale chromatyd.
Kod genetyczny
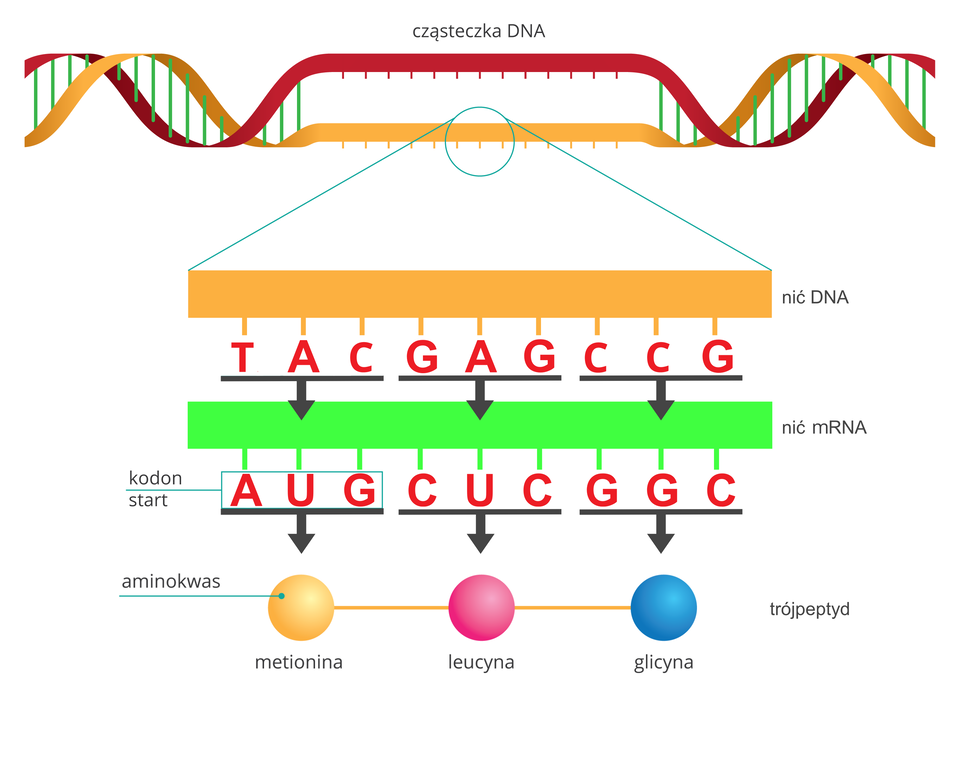
Kod genetyczny określa rodzaj i kolejność aminokwasów w łańcuchu polipeptydowym.
Cechy kodu genetycznego:
trójkowy, ponieważ jeden kodon zawiera trzy nukleotydy;
jednoznaczny, ponieważ dany kodon oznacza jeden aminokwas albo sygnał STOP;
zdegenerowany, ponieważ jeden aminokwas może być kodowany przez kilka kodonów;
bezprzecinkowy, ponieważ kodony są odczytywane kolejno;
niezachodzący, ponieważ dany nukleotyd należy w określonej ramce odczytu do jednego kodonu;
uniwersalny - te same kodony określają te same aminokwasy u prawie wszystkich organizmów;
kolinearny - kolejność kodonów odpowiada kolejności aminokwasów w polipeptydzie.
Kodon AUG najczęściej pełni funkcję kodonu START i koduje metioninę. Kodony UAA, UAG i UGA są standardowymi kodonami STOP, ale w pewnych genomach i szczególnych warunkach występują odstępstwa.
Ekspresja informacji genetycznej
Ekspresja genu obejmuje procesy prowadzące do powstania funkcjonalnego produktu genu. W przypadku genów kodujących białka są to:
transkrypcja;
u eukariontów obróbka potranskrypcyjna;
translacja;
modyfikacje potranslacyjne białka.
W przypadku genów kodujących funkcjonalne RNA ekspresja kończy się na wytworzeniu i dojrzewaniu odpowiedniej cząsteczki RNA.
Transkrypcja i obróbka potranskrypcyjna
Transkrypcja polega na syntezie RNA na matrycy DNA.
W komórkach eukariotycznych transkrypcja zachodzi w jądrze komórkowym:
Pierwotny transkrypt genu kodującego białko, tzw. pre‑mRNA jest poddawany obróbce potranskrypcyjnej obejmującej:
dołączenie czapeczki do końca 5′;
poliadenylację końca 3′;
wycięcie intronów i połączenie eksonów (splicing).
W komórkach prokariotycznych transkrypcja zachodzi na terenie cytoplazmy, a wytworzony mRNA może być bezpośrednio wykorzystywany w translacji.
Translacja
Translacja jest syntezą polipeptydu na podstawie sekwencji kodonów mRNA. Zachodzi na rybosomach.

Film dostępny pod adresem /preview/resource/RZXXU8RYLP3Mh
Film nawiązujący do treści materiału pod tytułem: Przebieg translacji u Eukaryota.
Inicjacja: mała podjednostka rybosomu, inicjatorowy tRNA i czynniki inicjacyjne rozpoznają właściwe miejsce rozpoczęcia translacji. Po rozpoznaniu AUG dołącza duża podjednostka rybosomu.
Elongacja: aminoacylo‑tRNA wiąże się w miejscu A rybosomu. Powstaje wiązanie peptydowe, którego utworzenie katalizuje rRNA dużej podjednostki. Rybosom przesuwa się o jeden kodon, a kolejne tRNA przechodzą przez miejsca A, P i E.
Terminacja: gdy w miejscu A znajdzie się kodon STOP, wiąże się czynnik uwalniający. Łańcuch polipeptydowy zostaje odłączony, a kompleks translacyjny rozpada się.
Modyfikacje potranslacyjne białek
Polipeptyd powstający na rybosomie nie zawsze jest od razu aktywnym białkiem. Może wymagać:
prawidłowego sfałdowania;
utworzenia mostków disiarczkowych;
proteolitycznego odcięcia fragmentów;
fosforylacji;
glikozylacji;
acetylacji, metylacji lub innych modyfikacji chemicznych;
połączenia z innymi podjednostkami.
Modyfikacje potranslacyjne wpływają na aktywność, lokalizację, trwałość i oddziaływania białka. Białka zbędne albo nieprawidłowo sfałdowane mogą zostać oznaczone ubikwityną i zdegradowane w proteasomie.
Regulacja ekspresji genów w komórkach eukariotycznych
Komórki organizmu wielokomórkowego mają zasadniczo ten sam genom, ale różnią się zestawem aktywnych genów. Selektywna ekspresja genów umożliwia specjalizację komórek i dostosowanie ich aktywności do warunków.
Regulacja ekspresji genów może zachodzić na wielu poziomach.

Dostępność do genu
Modyfikacje histonów wpływają na stopień upakowania chromatyny. Acetylacja histonówjest zwykle związana z rozluźnieniem chromatyny, natomiast metylacjaz jej kondensacją i ograniczeniem transkrypcji.
Regulacja transkrypcji
Czynniki transkrypcyjne wiążą się z promotorami oraz sekwencjami regulatorowymi, takimi jak sekwencje wzmacniające i wyciszające. Mogą zwiększać albo zmniejszać częstość inicjowania transkrypcji.
Regulacja potranskrypcyjna
Obejmuje m.in. alternatywny splicing, który pozwala wytworzyć z jednego pre‑mRNA różne dojrzałe cząsteczki mRNA, a w konsekwencji różne izoformy białka.
Regulacja translacyjna
Polega m.in. na kontrolowaniu dostępu rybosomów i czynników inicjacyjnych do mRNA. miRNA związany z kompleksem białkowym może zahamować translację albo przyczynić się do degradacji mRNA.
Regulacja potranslacyjna
Obejmuje aktywowanie, hamowanie, kierowanie do odpowiednich przedziałów komórki i kontrolowaną degradację białek. Dzięki temu komórka może szybko zmienić aktywność istniejących białek bez konieczności ponownej transkrypcji i translacji.
Podstawowe pojęcia stosowane w genetyce klasycznej
W genetyce klasycznej gen traktuje się jako czynnik warunkujący określoną cechę. Różne warianty tego samego genu nazywa się allelami. U organizmu diploidalnego (2n) allele danego genu znajdują się w odpowiadających sobie loci chromosomów homologicznych.
Genotyp oznacza zestaw alleli organizmu, natomiast fenotyp jest zespołem jego cech, które powstają w wyniku działania genotypu oraz wpływu środowiska.
Osobnik mający dwa jednakowe allele badanego genu jest homozygotą: dominującą, np. AA, albo recesywną, np. aa. Osobnik mający dwa różne allele jest heterozygotą, np. Aa.
W przypadku dominacji zupełnej allel dominujący ujawnia się zarówno u homozygoty dominującej, jak i u heterozygoty, natomiast działanie allelu recesywnego jest widoczne fenotypowo tylko u homozygoty recesywnej.
Prawa Mendla
Prawo czystości gamet (I prawo Mendla): do każdej gamety trafia tylko jeden allel z pary alleli danego genu. Rozdzielenie alleli następuje podczas powstawania gamet.
Prawo niezależnego dziedziczenia cech (II prawo Mendla): allele należące do różnych par genów mogą być przekazywane do gamet niezależnie.
Allele:
A – żółte nasiona
a – zielone nasiona
B – gładka powierzchnia nasion
b – pomarszczona powierzchnia nasion
duże A – żółte nasiona
małe a – zielone nasiona
duże B – gładka powierzchnia nasion
małe b – pomarszczona powierzchnia nasion
Pokolenie rodzicielskie: AABB × aabb
Pokolenie rodzicielskie: duże A duże A duże B duże B × małe a małe a małe b małe b
Gamety: AB × ab
Gamety: duże A duże B × małe a małe b
F1 (pierwsze pokolenie potomne):

Stosunek fenotypowy 4 : 0 (wszystkie osobniki tworzą żółte, gładkie nasiona)
Gamety: AB, Ab, aB, ab × AB, Ab, aB, ab
Gamety: duże A duże B, duże A małe b, małe a duże B, małe a małe b × duże A duże B, duże A małe b, małe a duże B, małe a małe b
F2 (drugie pokolenie potomne):

Stosunek fenotypowy 9 : 3 : 3 : 1
Wszystkie osobniki, u których występował choć jeden allel dominujący A i B, miały żółte, gładkie nasiona.
Osobniki z jednym allelem dominującym A i dwoma allelami recesywnymi b miały żółte, pomarszczone nasiona.
Osobniki z dwoma allelami recesywnymi a, ale jednym dominującym B miały zielone, gładkie nasiona.
Osobniki z allelami recesywnymi a i b miały zielone, pomarszczone nasiona.
Wszystkie osobniki, u których występował choć jeden allel dominujący duże A i duże B, miały żółte, gładkie nasiona. Wszystkie osobniki, u których występował choć jeden
Osobniki z jednym allelem dominującym duże A i dwoma allelami recesywnymi małe b miały żółte, pomarszczone nasiona.
Osobniki z dwoma allelami recesywnymi małe a, ale jednym dominującym duże B miały zielone, gładkie nasiona.
Osobniki z allelami recesywnymi małe a i duże b miały zielone, pomarszczone nasiona.
Krzyżówka testowa
Krzyżówka testowa służy do określenia genotypu osobnika o fenotypie dominującym. Osobnika badanego krzyżuje się z homozygotą recesywną:
jeżeli całe potomstwo ma fenotyp dominujący, badany osobnik był homozygotą dominującą;
jeżeli potomstwo wykazuje fenotyp dominujący i recesywny w stosunku 1 : 1, badany osobnik był heterozygotą.
Zależności między genami
Dominacja zupełna
Heterozygota ma taki sam fenotyp jak homozygota dominująca. Stosunek fenotypowy w potomstwie heterozygot wynosi 3 : 1, a genotypowy 1 : 2 : 1.
Dominacja niezupełna
Heterozygota ma fenotyp różniący się od fenotypów obu homozygot, często pośredni. Po skrzyżowaniu dwóch heterozygot zarówno stosunek genotypowy, jak i fenotypowy wynosi: 1 : 2 : 1.

Kodominacja
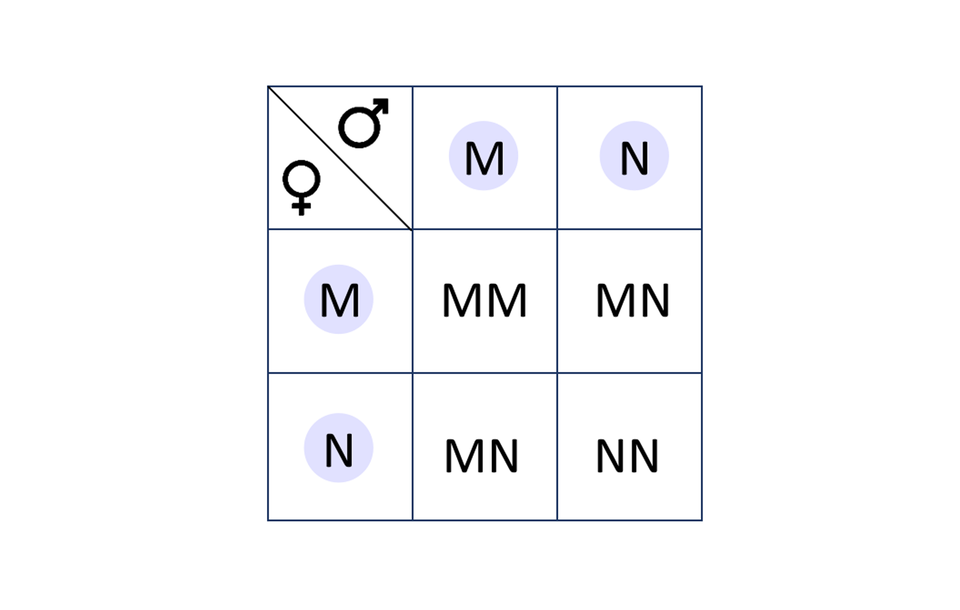
W kodominacjioba allele ujawniają się w fenotypie heterozygoty równocześnie i w sposób możliwy do rozróżnienia. Nie powstaje fenotyp pośredni. Przykładem jest grupa krwi MN oraz grupa AB w układzie AB0.
Allele wielokrotne
O allelach wielokrotnych mówi się wtedy, gdy w populacji występują więcej niż dwa allele danego genu. Np. w układzie grupowym AB0 występują allele IIndeks górny ᴬᴬ, IIndeks górny ᴮᴮ oraz i, przy czym:
IIndeks górny AA i IIndeks górny BB są względem siebie kodominujące i dominują nad allelem i;
genotyp IIndeks górny ᴬᴬIIndeks górny ᴮᴮwarunkuje grupę AB;
genotyp ii warunkuje grupę 0.

Plejotropia
Plejotropia polega na wpływie jednego genu na wiele cech organizmu. Jest możliwa, gdy produkt genu działa w wielu tkankach lub uczestniczy w procesie o licznych następstwach fizjologicznych.

Dopełnianie się genów
Dopełnianie się genów to zjawisko współdziałania dwóch lub więcej alleli różnych genów w wytworzeniu danej cechy. Na przykład synteza barwnika odpowiedzialnego za kolor kwiatów u groszku pachnącego wymaga obecności co najmniej jednego dominującego allelu każdego z dwóch genów, A i B. Rośliny o genotypach aaBb, Aabb lub aabb mają kwiaty pozbawione tego barwnika. W pokoleniu FIndeks dolny 22może powstać stosunek fenotypowy 9 : 7.
Poligenia i geny kumulatywne
Poligenia oznacza warunkowanie jednej cechy przez wiele genów. Jeśli działanie alleli kolejnych genów sumuje się, są one nazywane genami kumulatywnymi.
Poligenicznie dziedziczą się przede wszystkim cechy ilościowe, np. wzrost, masa ciała, intensywność zabarwienia czy wiele parametrów fizjologicznych. Cechy takie mogą wykazywać zmienność ciągłą i zwykle silnie zależą również od środowiska.
Epistaza i hipostaza
Epistaza jest oddziaływaniem między różnymi genami, w którym allele jednego genu maskują lub modyfikują fenotypowy efekt innego genu:
gen maskujący określa się jako epistatyczny;
gen, którego działanie jest maskowane, to gen hipostatyczny.
Epistaza może zmieniać klasyczny stosunek rozczepienia cech w pokoleniu FIndeks dolny 22 krzyżówki dwugenowej z 9 : 3 : 3 : 1, np. na 9 : 3 : 4.
Chromosomowa teoria dziedziczenia
Chromosomowa teoria dziedziczenia łączy prawa genetyki z przebiegiem mejozy. Jej podstawowe założenia są następujące:
geny są rozmieszczone w chromosomach, zajmując w nich określone miejsce, czyli locus;
allele danego genu zajmują odpowiadające sobie loci chromosomów homologicznych;
geny są ułożone wzdłuż chromosomu;
allele rozdzielają się do gamet wskutek segregacji chromosomów homologicznych;
geny położone na tym samym chromosomie nazywane są genami sprzężonymi.
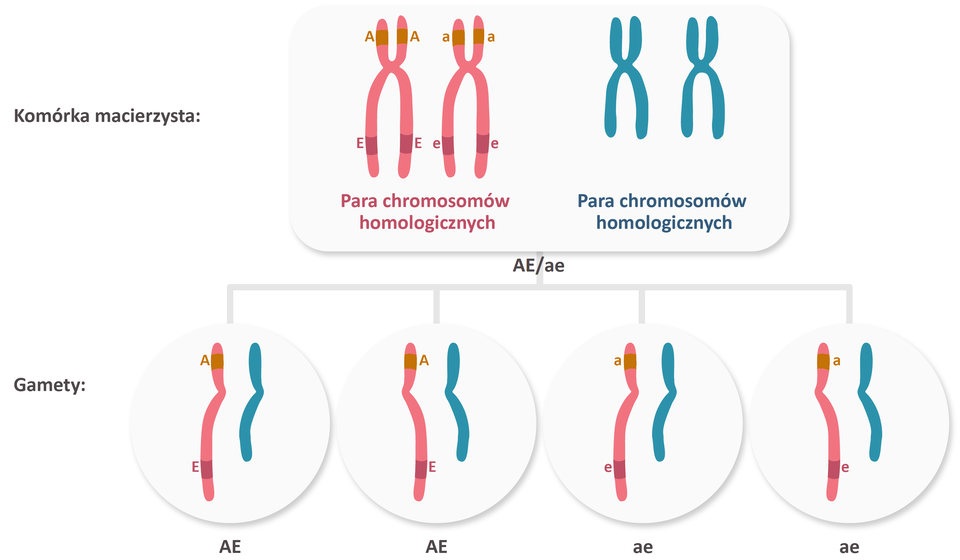
Sprzężenie genów nie jest całkowite. Rozdzielenie genów sprzężonych może nastąpić na skutek crossing‑over zachodzącego podczas mejozy.
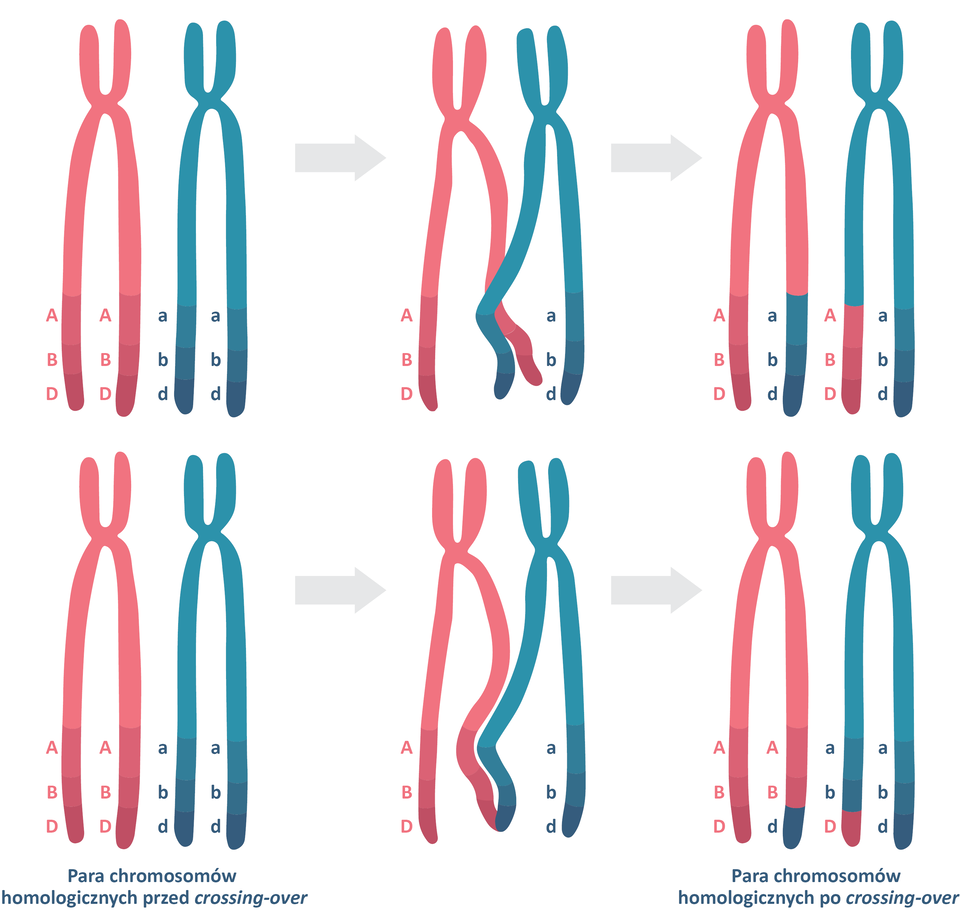
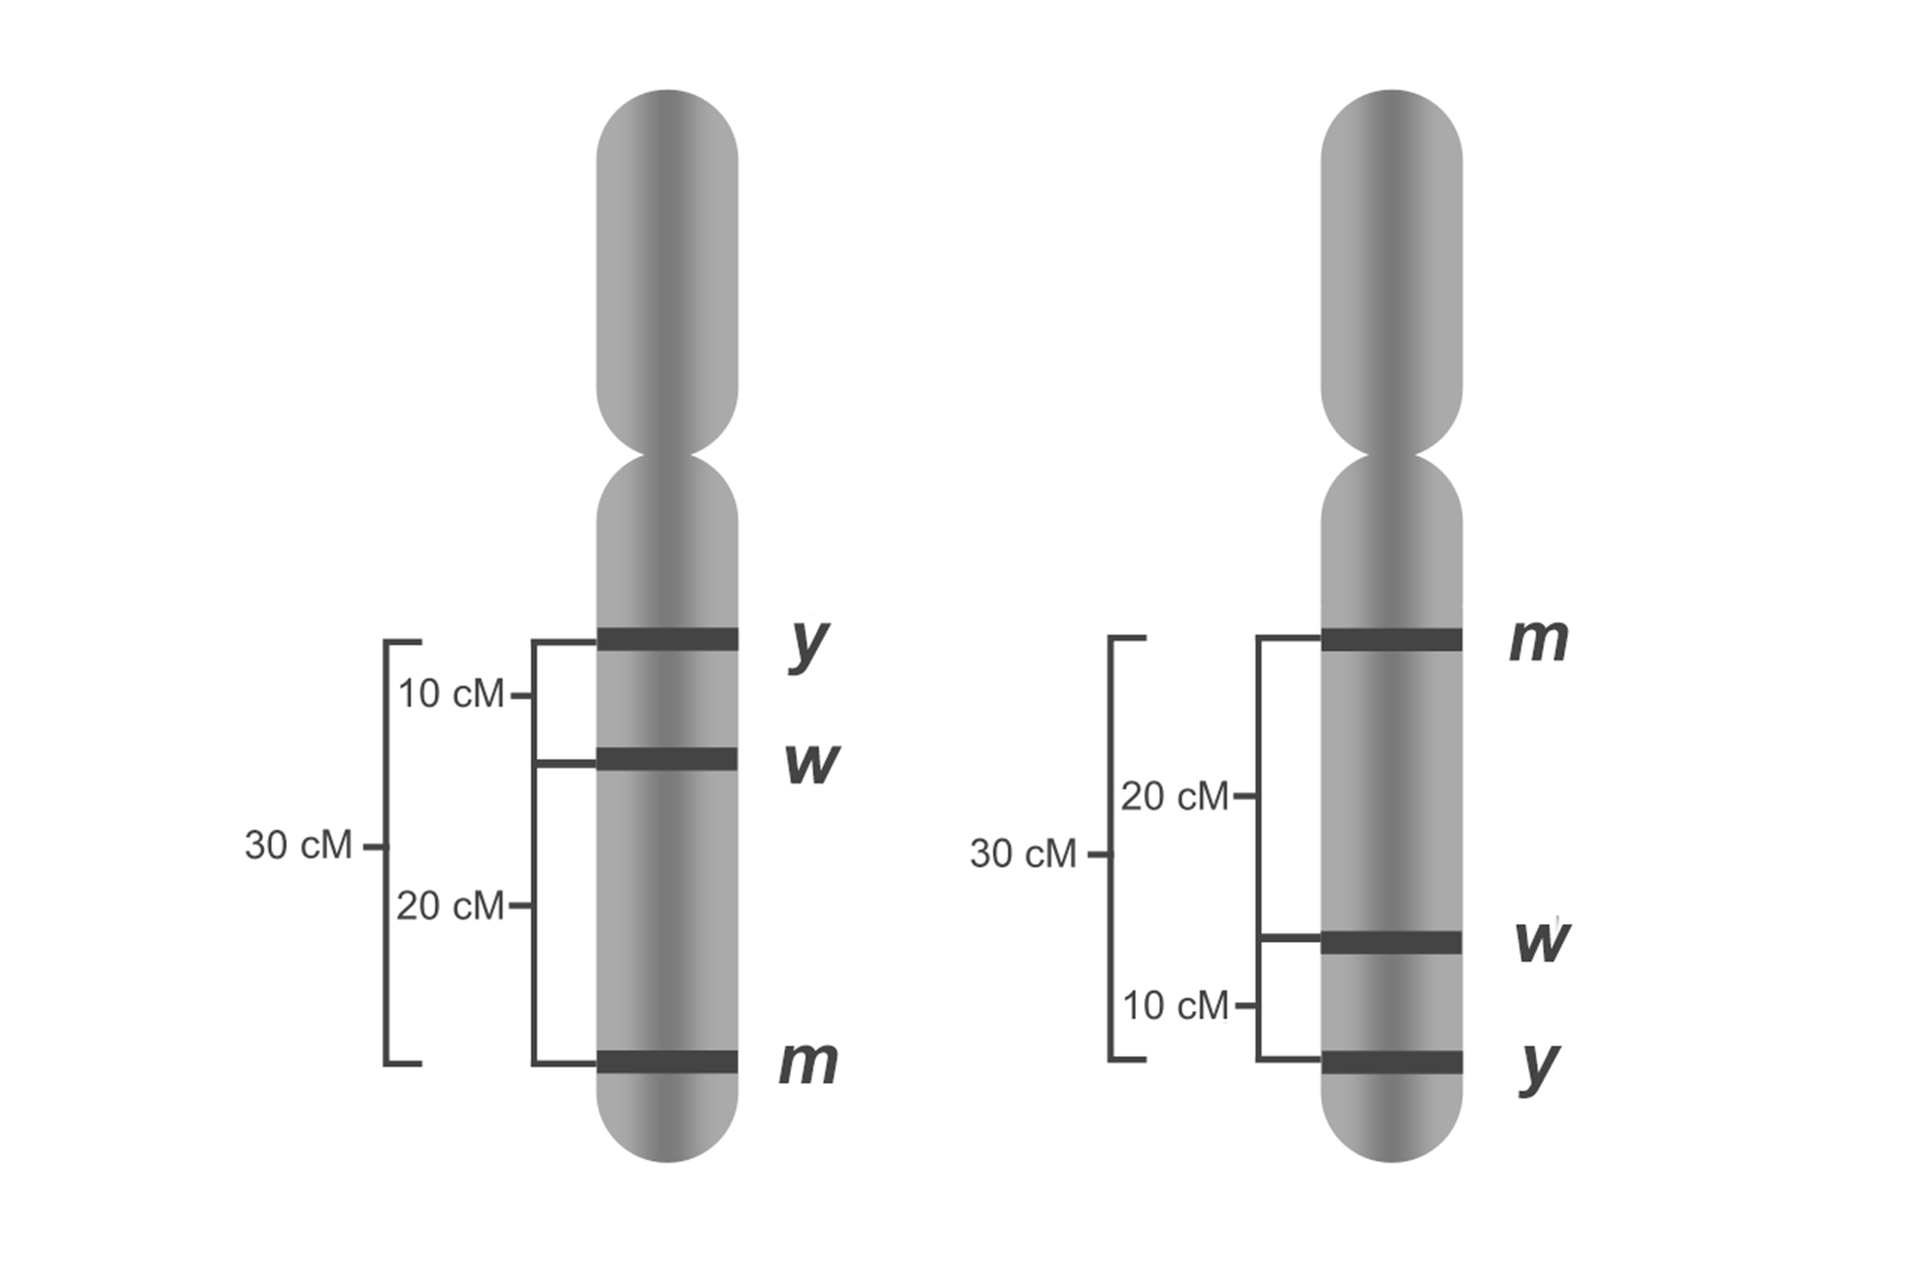
Im większa odległość między genami, tym większe prawdopodobieństwo crossing‑over między ich loci. Częstość rekombinacji oblicza się według wzoru:
liczba rekombinantów / całkowita liczba potomstwa × 100%.
Częstość rekombinacji wynosząca 1% odpowiada w uproszczonym mapowaniu odległości 1 centymorgana (cm).
Mapowanie genów
Znając częstości rekombinacji między poszczególnymi genami można ustalić ich kolejność na chromosomie.
Genetyczna determinacja płci i cechy sprzężone z płcią
Genetyczna płeć człowieka determinowana jest obecnością chromosomów płci: u kobiet – dwóch chromosomów X, u mężczyzn – jednego chromosomu X i jednego chromosomu Y.
Cechy sprzężone z chromosomem X są warunkowane przez geny znajdujące się na tym chromosomie. Recesywne allele takich genów częściej ujawniają się fenotypowo u osób mających tylko jeden chromosom X, ponieważ nie ma drugiego allelu, który mógłby zamaskować ich działanie. Przykładami chorób recesywnych sprzężonych z chromosomem X są hemofilia, daltonizm oraz dystrofia mięśniowa Duchenne’a.

Dziedziczenie pozajądrowe
Dziedziczenie pozajądrowe to dziedziczenie cech uwarunkowanych genami znajdującymi się poza jądrem komórkowym. U eukariontów część informacji genetycznej jest zlokalizowana w mitochondriach, a u roślin i protistów roślinopodobnych także w plastydach.
U człowieka mitochondrialne DNA (mtDNA) jest dziedziczone w linii matczynej, ponieważ mitochondria zygoty pochodzą niemal wyłącznie z komórki jajowej. Matka przekazuje mtDNA wszystkim swoim dzieciom, natomiast ojciec zasadniczo nie przekazuje go potomstwu.
U roślin dziedziczenie plastydowego DNA najczęściej odbywa się w linii żeńskiej, wyjątkowo w linii męskiej lub jest dziedziczeniem obustronnym.
Cechy warunkowane przez DNA zawarte w organellach nie wykazują typowych proporcji dziedziczenia mendlowskiego.
Zmienność organizmów
Zmienność organizmów oznacza występowanie różnic między osobnikami tego samego gatunku. Różnice mogą dotyczyć cech morfologicznych, fizjologicznych, biochemicznych i behawioralnych.
Fenotyp osobnika jest wynikiem współdziałania genotypu oraz środowiska.

Film dostępny pod adresem /preview/resource/R1TsKfEh7wQF3
Film pod tytułem: "Fenotyp jako wypadkowa zmienności genetycznej i środowiskowej".
Zmienność środowiskowa **(modyfikacyjna)**obejmuje różnice fenotypu powstające pod wpływem warunków środowiska bez zmiany sekwencji DNA.
Do czynników środowiskowych wpływających na fenotyp należą m.in. temperatura, światło, dostępność wody i składników pokarmowych, dostępność przestrzeni do życia.
Plastyczność fenotypowa jest zdolnością jednego genotypu do wytwarzania różnych fenotypów w zależności od środowiska. Norma reakcji opisuje zakres fenotypów, jaki dany genotyp może wytworzyć w różnych warunkach. Norma reakcji jest właściwością genotypu, ale obserwowany fenotyp powstaje wskutek interakcji genotypu ze środowiskiem.
Zmienność genetyczna wynika z różnic w sekwencji i organizacji materiału genetycznego osobników. Jej źródłami są mutacje i rekombinacja genetyczna. Mutacja jest pierwotnym źródłem nowych wariantów sekwencji DNA. Rekombinacja nie tworzy zwykle nowych alleli, lecz nowe kombinacje alleli już istniejących.
Zmienność rekombinacyjna
Zmienność rekombinacyjna jest wynikiem rozmnażania płciowego, a jej źródłem są:
proces crossing‑over zachodzący podczas mejozy;
losowe rozchodzenie się chromosomów homologicznych do gamet:
losowe łączenie się gamet podczas zapłodnienia.
Zmienność mutacyjna
Mutacja to nagła i trwała zmiana w materiale genetycznym komórki. Może zachodzić spontanicznie, ale częstotliwość ich powstawania zwiększają niektóre czynniki środowiskowe - mutageny.
- Nazwa kategorii: Mutacje – podział
- Nazwa kategorii: w zależności od rodzaju komórki, której dotyczą:
- Nazwa kategorii: mutacje somatyczne
- Nazwa kategorii: mutacje generatywne Koniec elementów należących do kategorii w zależności od rodzaju komórki, której dotyczą:
- Nazwa kategorii: w zależności od przyczyny:
- Nazwa kategorii: mutacje spontaniczne
- Nazwa kategorii: mutacje indukowane Koniec elementów należących do kategorii w zależności od przyczyny:
- Nazwa kategorii: w zależności od skutku dla organizmu:
- Nazwa kategorii: niekorzystne
- Nazwa kategorii: subletalne
- Nazwa kategorii: letalne Koniec elementów należących do kategorii niekorzystne
- Nazwa kategorii: neutralne
- Nazwa kategorii: korzystne Koniec elementów należących do kategorii w zależności od skutku dla organizmu:
- Nazwa kategorii: w zależności od poziomu organizacji materiału genetycznego, którego dotyczą:
- Nazwa kategorii: mutacje genowe
- Nazwa kategorii: mutacje chromosomowe
- Nazwa kategorii: mutacje chromosomowe strukturalne
- Nazwa kategorii: mutacje chromosomowe liczbowe Koniec elementów należących do kategorii mutacje chromosomowe
- Elementy należące do kategorii Mutacje – podział
- Elementy należące do kategorii w zależności od rodzaju komórki, której dotyczą:
- Elementy należące do kategorii w zależności od przyczyny:
- Elementy należące do kategorii w zależności od skutku dla organizmu:
- Elementy należące do kategorii niekorzystne
- Elementy należące do kategorii w zależności od poziomu organizacji materiału genetycznego, którego dotyczą:
- Elementy należące do kategorii mutacje chromosomowe
Mutacje somatyczne zachodzą w materiale genetycznym komórek somatycznych, czyli takich, które budują ciało (np. komórki kości, płuc, jelit). Są niedziedziczne.
Mutacje generatywne zachodzą w materiale genetycznym gamet lub komórek których one powstają. Są to zmiany dziedziczne.
Mutacje spontaniczne to zmiany w informacji genetycznej zachodzące samorzutnie, bez wyraźnego wpływu czynników środowiskowych. Zmiany te następują np. w czasie replikacji DNA.
Mutacje indukowane to zmiany w informacji genetycznej zachodzące pod wpływem działania mutagenów. Do czynników uszkadzających i zmieniających informację genetyczną zalicza się mutageny chemiczne (np. analogi zasad azotowych), fizyczne (np. promieniowanie UV) i biologiczne (np. niektóre toksyny bakteryjne).
Mutacje korzystne związane są z pojawieniem się nowych, korzystnych cech organizmu.
Mutacje neutralne są dla organizmu zmianami obojętnymi. W zmieniających się warunkach środowiska początkowo neutralna dla organizmu mutacja może okazać się korzystna, jeśli zwiększa możliwości adaptacyjne, lub niekorzystna, jeśli możliwości te są zmniejszone.
Mutacje niekorzystne mogą prowadzić do śmierci organizmu (mutacje letalne) lub znacznie upośledzać jego funkcjonowanie (mutacje subletalne).
Mutacje genowe dotyczą zmiany w kolejności lub liczbie nukleotydów w obrębie jednego genu.
Mutacje chromosomowe dotyczą zmian w strukturze chromosomu (mutacje chromosomowe strukturalne) lub w liczbie chromosomów (mutacje chromosomowe liczbowe).
Mutacje chromosomowe strukturalne polegają na zmianie budowy chromosomu, np. w wyniku pękania chromatyd i ich błędnego połączenia.
Mutacje chromosomowe liczbowe polegają na zmianie liczby chromosomów w jadrze komórkowym:
- Nazwa kategorii: Mutacje chromosomowe liczbowe
- Nazwa kategorii: euploidia
- Nazwa kategorii: monoploidia
- Nazwa kategorii: poliploidia
- Nazwa kategorii: autopoliploidia
- Nazwa kategorii: allopoliploidia Koniec elementów należących do kategorii poliploidia
- Nazwa kategorii: aneuploidia
- Nazwa kategorii: monosomia
- Nazwa kategorii: trisomia
- Nazwa kategorii: nullisomia
- Nazwa kategorii: tetrasomia Koniec elementów należących do kategorii aneuploidia
- Elementy należące do kategorii Mutacje chromosomowe liczbowe
- Elementy należące do kategorii euploidia
- Elementy należące do kategorii poliploidia
- Elementy należące do kategorii aneuploidia
aneuploidie – brak lub nadmiar jednego albo kilku pojedynczych chromosomów, np. monosomie (2n - 1), trisomie (2n + 1);
euploidie – zmiana liczby kompletnych zestawów chromosomów: monoploidia (n) i poliploidia (np. 3n, 5n). Jeśli zwielokrotnione genomy są genetycznie jednakowe, mówimy o autopoliploidii, a w przypadku gdy są różne – o allopoliploidii.
Zmienność genetyczna ciągła i nieciągła
Ze względu na sposób występowania cechy w populacji, zmienność genetyczną można podzielić na zmienność ciągła i zmienność nieciągłą.
Zmienność ciągła dotyczy cech ilościowych, które mogą przyjmować wiele wartości pośrednich, np. wzrost, masa ciała, intensywność pigmentacji skóry, plenność i wydajność organizmów hodowlanych.
Zmienność nieciągła dotyczy cech występujących w wyraźnie oddzielonych kategoriach, bez ciągłego szeregu form pośrednich, np. wzór odcisku palca, przyrośnięty lub wolny płatek ucha.
Znaczenie zmienności genetycznej
Zmienność genetyczna:
zwiększa różnorodność genetyczną populacji;
umożliwia działanie doboru naturalnego;
pozwala populacjom odpowiadać ewolucyjnie na zmiany środowiska;
może przyczyniać się do powstawania nowych przystosowań i gatunków.
Choroby genetyczne człowieka
Choroby genetyczne są następstwem zmian w materiale genetycznym. Zmiany te mogą dotyczyć sekwencji pojedynczego genu, struktury chromosomu albo liczby chromosomów.
Ze względu na podłoże wyróżnia się:
choroby jednogenowe, wynikające z mutacji w obrębie jednego genu;
choroby wieloczynnikowe, których rozwój zależy od działania wielu genów oraz czynników środowiskowych;
zespoły aberracji chromosomowych, powstające wskutek zmian liczby lub struktury chromosomów.
Choroby jednogenowe
Choroba jednogenowa może być dziedziczona:
autosomalnie recesywnie;
autosomalnie dominująco;
recesywnie w sprzężeniu z chromosomem X;
dominująco w sprzężeniu z chromosomem X.
Choroba autosomalna recesywna (np. albinizm, mukowiscydoza, fenyloketonuria, alkaptonuria) ujawnia się zwykle u osoby, która odziedziczyła nieprawidłowy allel danego genu od obojga rodziców. Heterozygota posiadająca nieprawidłowy allel najczęściej nie wykazuje objawów chorobowych i jest nazywana nosicielem.
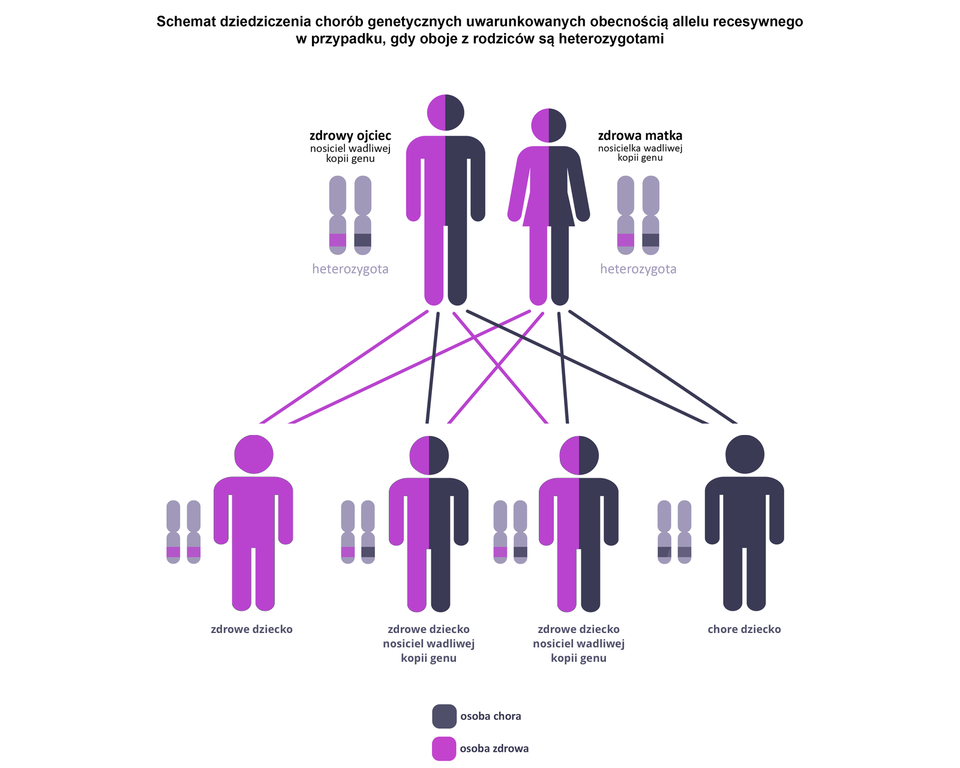
Niektóre choroby autosomalne recesywne przejawiają się niedoborem enzymu uczestniczącego w szlaku metabolicznym powodując tzw. blok metaboliczny. Zahamowanie określonego etapu przemiany może spowodować:
gromadzenie substratu lub jego toksycznych pochodnych;
niedobór produktu reakcji;
uruchomienie alternatywnych szlaków metabolicznych.
Nazwa choroby | Częstość | Produkt zmutowanego genu | Lokalizacja chromosomowa genu |
|---|---|---|---|
Nieprawidłowości metabolizmu aminokwasów | |||
Fenyloketonuria | 1/7 tys. | brak enzymu hydroksylazy fenyloalaninowej | 12q24 |
Alkaptonuria | 1/250 tys. | brak enzymu dioksygenazy 1,2‑homogentyzynowej | 3q2 |
Albinizm | 1/35 tys. | brak enzymu tyrozynazy | 11q |
Nieprawidłowości metabolizmu węglowodanów | |||
Galaktozemia | 1/35 tys. do 1/60 tys. | brak enzymu urydylotransferazy galaktozo‑1‑fosforanowej | 9q13 |
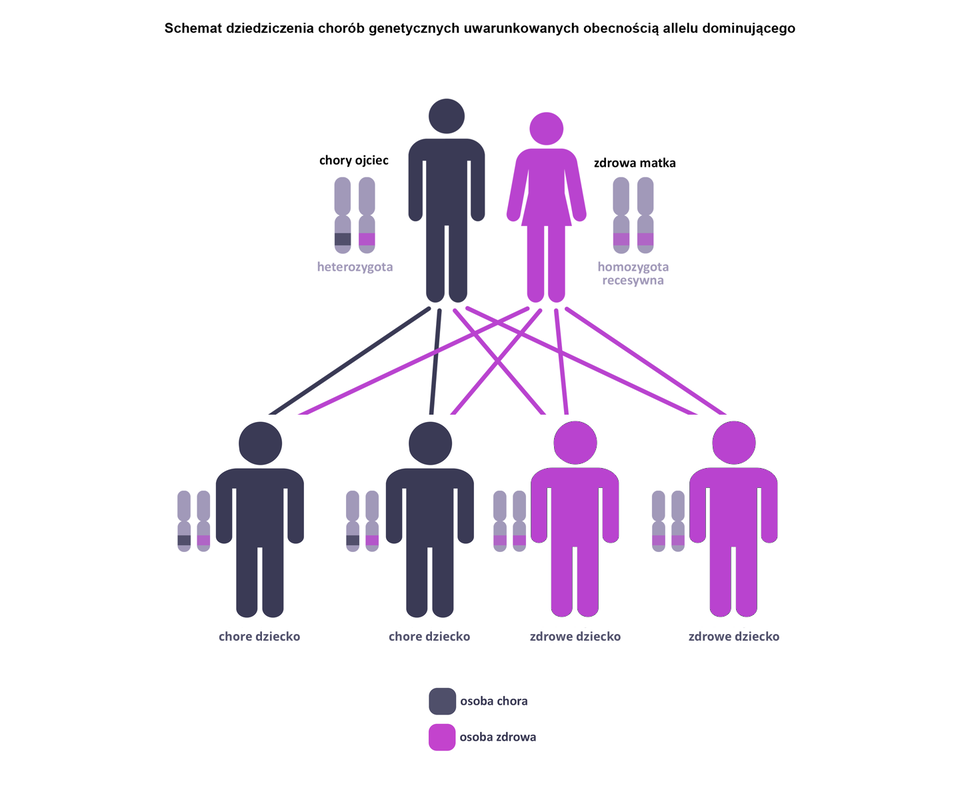
Choroby autosomalne dominujące (np. pląsawica Huntingtona) ujawniają się u osoby mającej jeden nieprawidłowy allel. Osoba heterozygotyczna ma 50% szans na przekazanie wadliwego allelu każdemu dziecku, niezależnie od jego płci.
Choroby recesywne sprzężone z płcią (np. daltonizm, hemofilia) dotyczą nieprawidłowych alleli zlokalizowanych na chromosomie X. U osoby mającej jeden chromosom X pojedynczy patogenny wariant genu sprzężonego z X może wystarczyć do ujawnienia choroby. U osoby mającej dwa chromosomy X objawy recesywnej choroby sprzężonej z X pojawiają się zazwyczaj po odziedziczeniu dwóch patogennych wariantów.
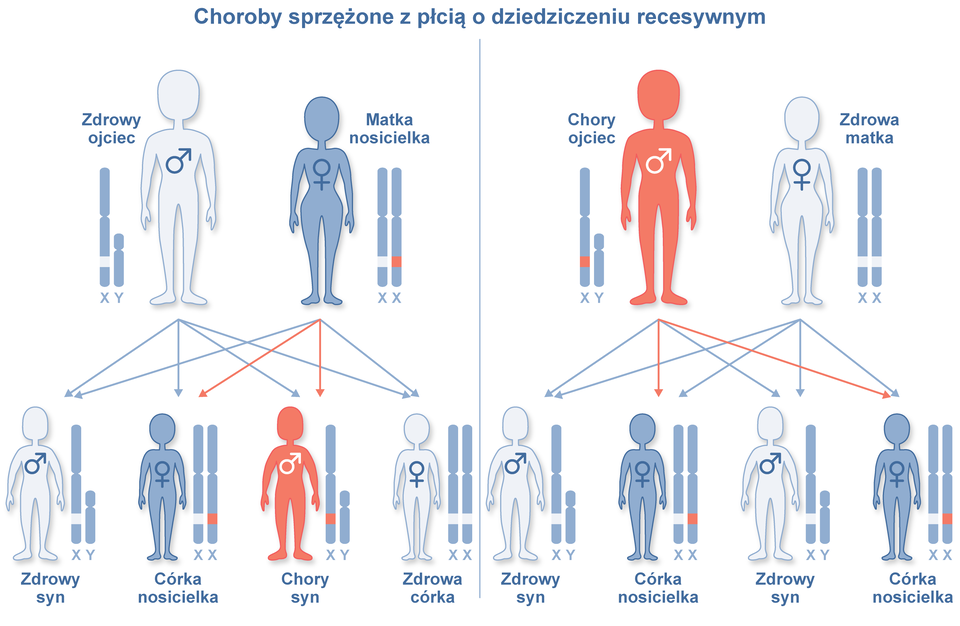
Choroby dominujące sprzężone z płcią (np. krzywica oporna na witaminę DIndeks dolny 33) występują u osób z jednym albo dwoma chromosomami X. Chory ojciec nie przekazuje wariantu synom, natomiast przekazuje go wszystkim córkom. Heterozygotyczna matka przekazuje wadliwy allel połowie dzieci, niezależnie od płci.
Analiza rodowodów w dziedziczeniu chorób jednogenowych
Rodowód genetyczny przedstawia występowanie cechy w rodzinie i relacje pokrewieństwa między osobami. Pozwala sformułować hipotezę o sposobie dziedziczenia, wyznaczać możliwe genotypy i szacować ryzyko wystąpienia cechy u potomstwa.
W rodowodzie:
kwadrat i koło tradycyjnie oznaczają osoby odpowiednio płci męskiej i żeńskiej;
symbol wypełniony oznacza osobę wykazującą analizowaną cechę;
półwypełnienie lub kropka oznaczają nosiciela, zależnie od przyjętej konwencji;
pozioma linia łączy rodziców;
linie pionowe i poziome przedstawiają potomstwo i rodzeństwo.
Cechy wskazujące na dziedziczenie autosomalne recesywne:
choroba może pomijać pokolenia;
chorzy mogą mieć zdrowych rodziców;
występuje podobnie często u obu płci;
częściej pojawia się u rodzeństwa niż w następujących po sobie pokoleniach.
Cechy wskazujące na dziedziczenie autosomalne dominujące:
cecha zwykle występuje w kolejnych pokoleniach;
chora osoba ma zwykle chorego rodzica;
dotyczy obu płci;
możliwe jest przekazanie cechy przez ojca synowi.
Cechy wskazujące na dziedziczenie recesywne sprzężone z X:
częściej chorują osoby mające jeden chromosom X;
nie obserwuje się przekazywania cechy z ojca na syna;
nieprawidłowy allel może być przekazywany przez zdrowe nosicielki;
chory ojciec przekazuje wariant wszystkim córkom.
Zespoły aberracji chromosomowych liczbowych i strukturalnych
Zespoły związane ze zmianą liczby chromosomów wynikają z aneuploidii, np:
monosomie: 2n − 1;
trisomie: 2n + 1.
Najczęstszą przyczyną jest nondysjunkcja, czyli nieprawidłowe rozdzielenie chromosomów homologicznych podczas mejozy.


Przykłady zespołów związanych z liczbą chromosomów.
Zespół Downa - trisomia autosomalna. Kariotypy osób z zespołem Downa: 47,XY,+21(kariotyp męski), 47,XX,+21(kariotyp żeński).
Zespół Klinefeltera- trisomia chromosomów płci. Kariotyp osób z zespołem Klinefeltera: 47,XXY.
Zespół Turnera- monosomia chromosomów płci. Kariotyp osób z zespołem Turnera: 45,X.
Zespoły aberacji chromosomowych strukturalnych są wynikiem mutacji zmieniających strukturę chromosomów:
Zespół cri du chat(zespół kociego krzyku) - delecja fragmentu krótkiego ramienia chromosomu 5.
Przewlekła białaczka szpikowa - translokacja wzajemna między chromosomami 9 i 22.
Diagnostyka cytogenetyczna
Kariotyp oznacza zestaw chromosomów komórki określony pod względem ich liczby i budowy. Kariogram jest uporządkowanym graficznym przedstawieniem chromosomów.
Klasyczna analiza kariotypu umożliwia wykrywanie:
aneuploidii;
poliploidii;
większych delecji i duplikacji;
dużych translokacji i inwersji.
Transformacja nowotworowa
Transformacja nowotworowa jest wieloetapowym procesem, w którym komórka nabywa zmiany umożliwiające, m.in. niekontrolowane namnażanie, unikanie mechanizmów śmierci i unikanie odpowiedzi immunologicznej.
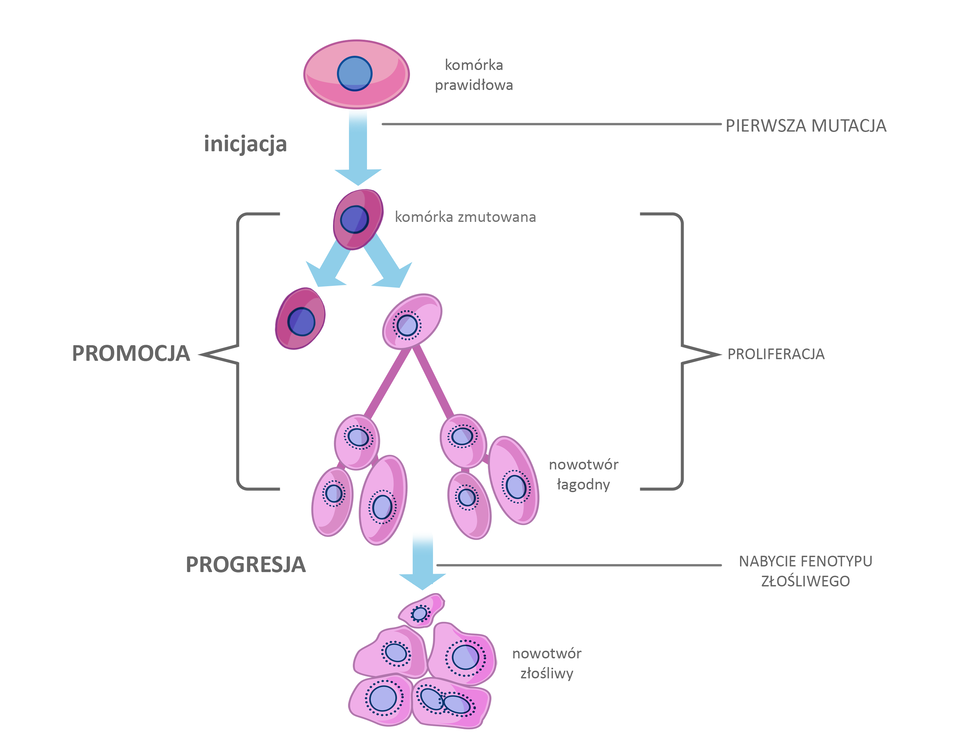
Nowotwór stanowi populację komórek wywodzących się z komórki, która uzyskała przewagę proliferacyjną. W miarę kolejnych podziałów powstają dalsze mutacje i subklony komórek.
Nowotwory łagodne:
nie naciekają destrukcyjnie sąsiednich tkanek;
nie tworzą przerzutów.
Nowotwory złośliwe:
naciekają otaczające tkanki;
mogą przenikać do naczyń;
mogą tworzyć przerzuty w odległych narządach.
Geny związane z nowotworzeniem
Protoonkogeny - kodują białka prawidłowo pobudzające wzrost, przeżycie lub podziały komórek. Mutacja aktywująca może przekształcić protoonkogen w onkogen.
Geny supresorowe - ograniczają podziały, kontrolują punkty kontrolne cyklu, uczestniczą w odpowiedzi na uszkodzenie DNA albo inicjują apoptozę. Utrata ich funkcji usuwa mechanizmy hamujące namnażanie się komórek nowotworowych.
Geny stabilności genomu - kodują białka uczestniczące w naprawie DNA, kontroli replikacji i zachowaniu prawidłowej struktury chromosomów. Ich mutacje zwiększają tempo powstawania niekorzystnych mutacji w innych genach.
Czynniki rakotwórcze
Czynniki rakotwórcze, czyli kancerogeny zwiększają prawdopodobieństwo rozwoju nowotworu. Mogą być:
fizyczne, np. promieniowanie UV i jonizujące;
chemiczne, np. składniki dymu tytoniowego;
biologiczne, np. niektóre wirusy, toksyny bakteryjne i grzybowe.
Nie każdy kancerogen działa przez bezpośrednie wywoływanie mutacji. Niektóre czynniki pobudzają przewlekły stan zapalny, zwiększają proliferację albo zaburzają regulację epigenetyczną.
Profilaktyka nowotworów
Profilaktyka pierwotna ogranicza prawdopodobieństwo powstania choroby. Należą do niej m.in.:
unikanie dymu tytoniowego;
ograniczanie ekspozycji na promieniowanie UV;
szczepienie przeciw wirusom brodawczaka ludzkiego (HPV) i zapalenia wątroby typu B (HBV);
aktywność fizyczna i utrzymywanie prawidłowej masy ciała;
ograniczenie ekspozycji na kancerogeny zawodowe.
Profilaktyka wtórna obejmuje badania przesiewowe wykonywane u osób bez objawów. Ich dobór zależy od wieku, płci, narządów, czynników ryzyka, historii rodzinnej i aktualnych krajowych zaleceń.
\