Podsumowanie wątku 18
Podsumowanie wątku 18
Ewolucja i jej dowody
Ewolucja biologiczna to zachodzące w kolejnych pokoleniach zmiany dziedzicznych cech populacji. Mogą one prowadzić do powstawania przystosowań, różnicowania się populacji oraz tworzenia nowych gatunków.
Ewolucji podlegają populacje, a nie pojedyncze osobniki. Nauką badającą przebieg i mechanizmy ewolucji jest biologia ewolucyjna.
O ewolucji świadczą dowody bezpośrednie i pośrednie. Dowody bezpośrednie to: skamieniałości(szczątki i odciski dawnych organizmów), formy przejściowe łączące cechy różnych grup (np. Archaeopteryxo cechach gada i ptaka), żywe skamieniałości (gatunki niezmienione od milionów lat, np. latimeria) oraz bezpośrednie obserwacje (np. rozwój lekooporności u bakterii).
Do pośrednich dowodów ewolucji należą: narządy homologiczne (np. kończyny przednie człowieka, ptaka i wieloryba), narządy analogiczne (np. skrzydło ptaka i owada), narządy szczątkowe (np. kość ogonowa u człowieka, szczątkowe skrzydła u ptaków nielotów); atawizmy (silne owłosienie twarzy i tułowia u człowieka) oraz dane z różnych dziedzin wiedzy, np. biochemii, genetyki, fizjologii, embriologii i biogeografii (np. podobieństwa budowy komórkowej, materiału genetycznego, procesów metabolicznych).
Dobór naturalny i dobór sztuczny
Pierwszą spójną teorię wyjaśniającą mechanizm ewolucji przedstawił Karol Darwin. Podstawą jego koncepcji była teoria doboru naturalnego.
Dobór naturalny polega na zróżnicowanym przeżywaniu i rozmnażaniu się osobników różniących się dziedzicznymi cechami. Faworyzowane są warianty cech zwiększające dostosowanie, czyli zdolność do przekazania genów następnym pokoleniom. Dobór nie jest procesem celowym, a wartość przystosowawcza cechy zależy od warunków środowiska.
Wyróżnia się kilka rodzajów doboru naturalnego:
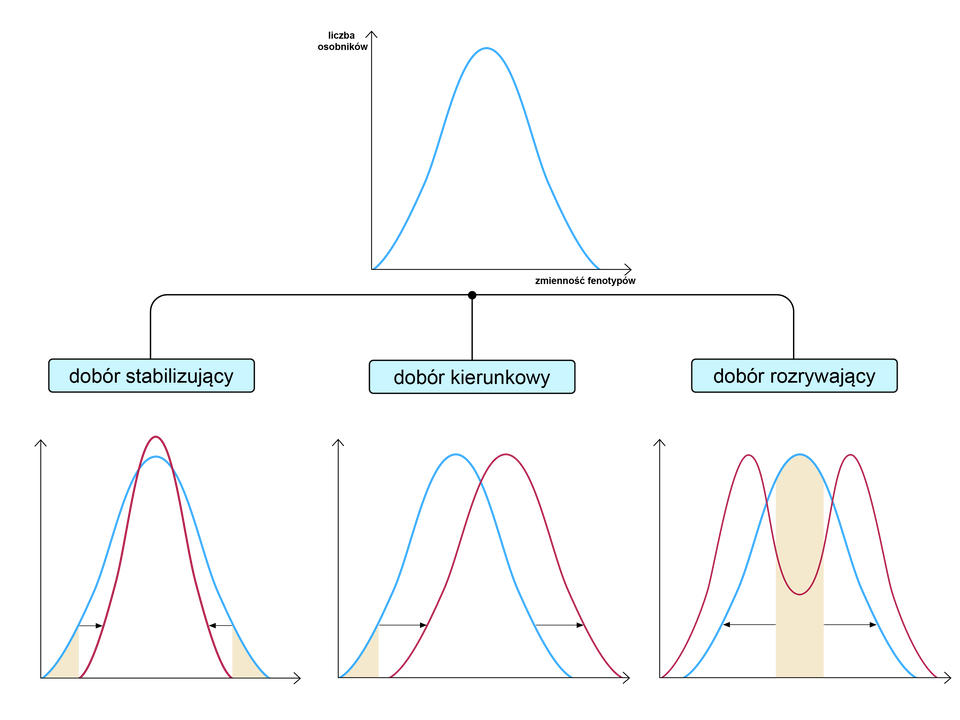
dobór stabilizujący faworyzuje fenotypy pośrednie, a eliminuje oba fenotypy skrajne. Działa głównie w stabilnych warunkach i zmniejsza zmienność populacji.
dobór kierunkowy faworyzuje jeden z fenotypów skrajnych. Powoduje przesunięcie średniej wartości cechy, zwłaszcza w zmieniającym się środowisku.
dobór rozrywający faworyzuje oba fenotypy skrajne, a eliminuje formy pośrednie. Może sprzyjać podziałowi populacji i specjacji.
dobór płciowy promuje cechy zwiększające szansę zdobycia partnera, nawet jeżeli obniżają one przeżywalność.
dobór krewniaczy sprzyja zachowaniom zwiększającym sukces rozrodczy osobników spokrewnionych, również kosztem własnego rozrodu.
Dobór sztuczny polega na wybieraniu przez człowieka do rozrodu osobników o pożądanych cechach. Prowadzi do powstawania ras zwierząt i odmian roślin.
Neodarwinizm (syntetyczna teoria ewolucji)
Darwin nie znał mechanizmów dziedziczenia ani źródeł zmienności genetycznej. Połączenie jego teorii z osiągnięciami genetyki, ekologii, biologii molekularnej i paleontologii doprowadziło w XX w. do powstania syntetycznej teorii ewolucji, nazywanej również neodarwinizmem. Zgodnie z nią:
podstawowymi jednostkami dziedziczenia są geny;
nowe allele powstają w wyniku mutacji;
podczas rozmnażania płciowego rekombinacja prowadzi do powstawania nowych kombinacji alleli;
dobór naturalny działa bezpośrednio na fenotypy osobników;
długofalowym skutkiem działania doboru naturalnego jest zmiana częstości alleli w puli genowej populacji.
Populacja jako jednostka ewolucji
Populacja to grupa osobników jednego gatunku żyjących na określonym obszarze i krzyżujących się ze sobą. Pula genowa populacji obejmuje wszystkie allele wszystkich genów obecne w populacji. Ewolucję można określić jako zmianę częstości alleli w kolejnych pokoleniach.
Prawo Hardy’ego‑Weinberga opisuje populację pozostającą w równowadze genetycznej. Dla dwóch alleli p i q częstości genotypów wynoszą:
pIndeks górny 22 — częstość jednej homozygoty;
2pq — częstość heterozygot;
q2 — częstość drugiej homozygoty.
Równowaga wymaga bardzo dużej liczebności populacji, losowego kojarzenia osobników oraz braku mutacji, migracji i doboru naturalnego. Jeśli częstości alleli w populacji się nie zmieniają, populacja nie ewoluuje. Model ten stanowi punkt odniesienia do wykrywania zmian ewolucyjnych
Dryf genetyczny
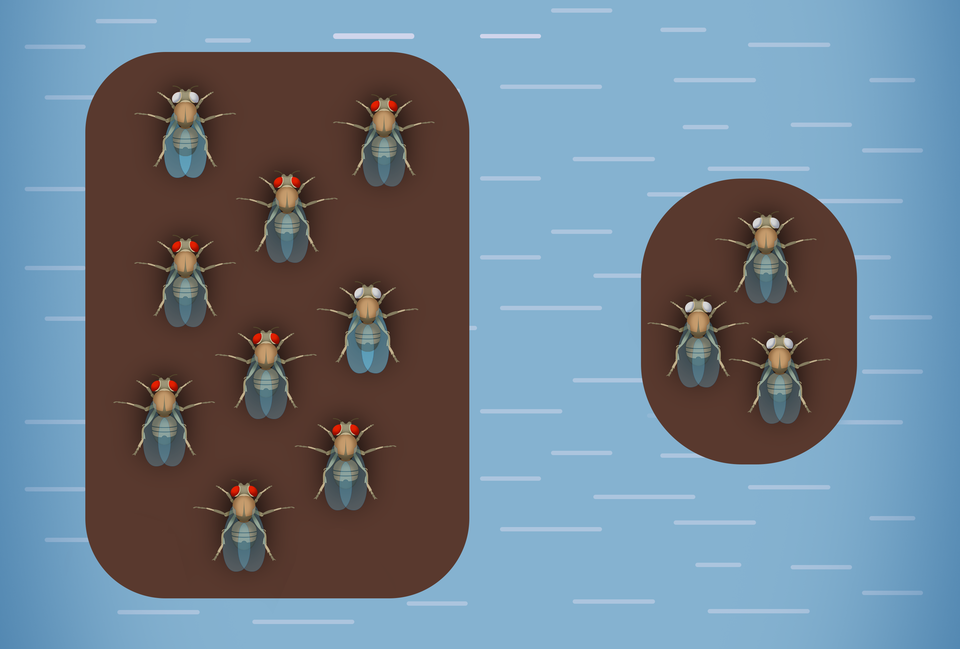
Dryf genetyczny to losowa zmiana częstości alleli w populacji. Najsilniej działa w małych populacjach i może prowadzić do przypadkowego utrwalenia lub zaniku allelu oraz zmniejszenia różnorodności genetycznej. Szczególnie wyraźnie przejawia się w dwóch sytuacjach:
Efekt wąskiego gardła zachodzi po gwałtownym zmniejszeniu liczebności populacji. Pula genowa populacji odbudowanej zależy od przypadkowego składu genetycznego osobników, które przeżyły.
Efekt założyciela występuje, gdy nową populację tworzy niewielka grupa osobników. Jej pula genowa może znacznie różnić się od puli populacji macierzystej.
Gatunek i powstawanie nowych gatunków
Gatunek biologiczny obejmuje populacje, których osobniki mogą w warunkach naturalnych krzyżować się i wydawać płodne potomstwo, a jednocześnie są izolowane rozrodczo od innych takich grup. Definicja ta ma ograniczone zastosowanie m.in. do organizmów rozmnażających się bezpłciowo i form kopalnych.
Wyróżnia się dwa główne rodzaje izolacji rozrodczej: bariery prezygotyczne i bariery postzygotyczne.
Bariery prezygotyczne zapobiegają zapłodnieniu. Należą do nich izolacje:
geograficzna;
środowiskowa;
sezonowa;
behawioralna;
mechaniczna;
gametyczna.
Bariery postzygotyczne działają po zapłodnieniu i obejmują:
obniżoną żywotność mieszańców;
bezpłodność mieszańców;
załamanie mieszańców w kolejnych pokoleniach.
Specjacja allopatryczna zachodzi po rozdzieleniu populacji barierą geograficzną. Odizolowane populacje podlegają niezależnym mutacjom, dryfowi i doborowi naturalnemu. Z czasem może powstać między nimi trwała izolacja rozrodcza.
Specjacja sympatryczna zachodzi bez geograficznego rozdzielenia populacji. Może być skutkiem doboru rozrywającego, doboru płciowego, zajęcia różnych nisz lub zmian liczby chromosomów.
Drzewa filogenetyczne
Filogeneza to historia ewolucyjna organizmów, a filogenetyka zajmuje się jej odtwarzaniem. Pokrewieństwo ustala się na podstawie cech morfologicznych, anatomicznych, paleontologicznych i molekularnych. Wyniki analiz przedstawia się najczęściej w postaci drzew filogenetycznych, czyli diagramów ukazujących przypuszczalne relacje pokrewieństwa i przebieg ewolucji badanych organizmów
Podstawowe elementy drzewa filogenetycznego:
korzeń — wspólny przodek wszystkich analizowanych taksonów;
węzeł — wspólny przodek i miejsce rozdzielenia linii;
gałąź — linia ewolucyjna;
liść — analizowany takson.
Klad obejmuje wspólnego przodka oraz wszystkich jego potomków. Kladogram pokazuje kolejność rozdzielania się linii, natomiast w filogramie długość gałęzi odzwierciedla liczbę zmian ewolucyjnych.
Dwa taksony są tym bliżej spokrewnione, im bardziej niedawnego wspólnego przodka posiadają. O pokrewieństwie nie decyduje ich położenie obok siebie na rysunku. Obracanie gałęzi wokół węzła nie zmienia treści drzewa. Drzewa filogenetyczne są hipotezami naukowymi, które mogą ulegać zmianie po uzyskaniu nowych danych
Prawidłowości ewolucji
Tempo ewolucji nie jest jednakowe. Zależy m.in. od warunków środowiska, liczebności i struktury genetycznej populacji oraz dostępności nisz ekologicznych.
Gradualizm zakłada powolne nagromadzanie drobnych zmian.
Punktualizm zakłada długie okresy względnej stabilności rozdzielone krótkimi okresami szybkich zmian.
Dywergencja to narastanie różnic między spokrewnionymi grupami poddanymi odmiennej presji selekcyjnej. Jej wynikiem są m.in. narządy homologiczne.
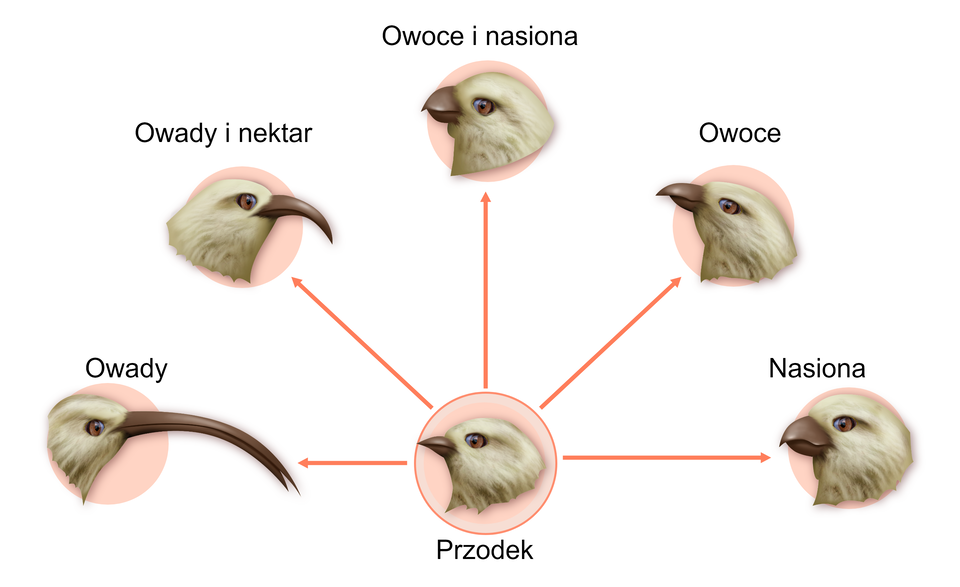
Radiacja adaptacyjna jest szczególnym przypadkiem dywergencji. Polega na szybkim powstawaniu wielu linii wywodzących się od wspólnego przodka i zajmujących różne nisze. Sprzyjają jej wolne nisze ekologiczne oraz innowacje ewolucyjne.
Konwergencja polega na niezależnym powstawaniu podobnych przystosowań u niespokrewnionych blisko organizmów żyjących w podobnych warunkach. Prowadzi do powstawania narządów analogicznych.
Koewolucja obejmuje wzajemne zmiany ewolucyjne gatunków, które stanowią dla siebie czynniki selekcyjne, np. roślina i zapylacz, drapieżnik i ofiara albo pasożyt i żywiciel.
Nieodwracalność ewolucji oznacza, że organizmy nie powracają dokładnie do stanu swoich przodków. Może wtórnie pojawić się pojedyncza utracona cecha, nie oznacza to jednak odtworzenia całej wcześniejszej formy.
Pochodzenie i ewolucja człowieka
Antropogeneza obejmuje procesy ewolucyjne prowadzące do powstania Homo sapiens. Człowiek należy do ssaków naczelnych, nadrodziny małp człekokształtnych i rodziny człowiekowatych. Nie pochodzi od współczesnych małp człekokształtnych — człowiek i pozostałe człowiekowate mają wspólnych przodków.
Najważniejsze cechy człowieka:
trwała dwunożność i pionowa postawa;
esowato wygięty kręgosłup;
krótka i szeroka miednica;
długie kończyny dolne;
wysklepiona stopa i nieprzeciwstawny paluch;
ręce uwolnione od funkcji lokomocyjnej;
rozwinięte mózgowie;
mowa, myślenie abstrakcyjne i kultura.
Ewolucja człowieka nie przebiegała liniowo. Była rozgałęzionym procesem, w którym współistniało wiele gatunków.
Sahelantrop i ardipitek należeli do wczesnych przedstawicieli linii prowadzącej do człowieka.
Australopiteki poruszały się dwunożnie, ale miały stosunkowo niewielki mózg i zachowywały cechy związane z życiem na drzewach.
Homo habilis wytwarzał proste narzędzia kamienne.
Homo erectus opuścił Afrykę, wytwarzał bardziej zaawansowane narzędzia i posługiwał się ogniem.
Neandertalczycy (Homo neanderthalensis) żyli w Europie i zachodniej Azji, wykorzystywali narzędzia, ogień i praktykowali pochówki.
Homo sapiens powstał w Afryce około 300 tys. lat temu, a następnie rozprzestrzenił się na inne kontynenty.