Podsumowanie wątku 7
Wejdź na wyższy poziom
Nietypowy przyrost na grubość łodyg roślin jednoliściennych
Większość roślin jednoliściennych nie wykazuje przyrostu wtórnego na grubość. Wynika to z braku obecności wtórnych tkanek merystematycznych: kambium i fellogenu. Nieliczne, drzewiaste formy roślin jednoliściennych z rodzaju: dracena (Dracaena), juka (Yucca), aloes (Aloe) i palmy z rodziny arekowatych (Arecaceae), przyrastają na grubość dzięki aktywności merystematycznej tzw. kambium anomalnego.
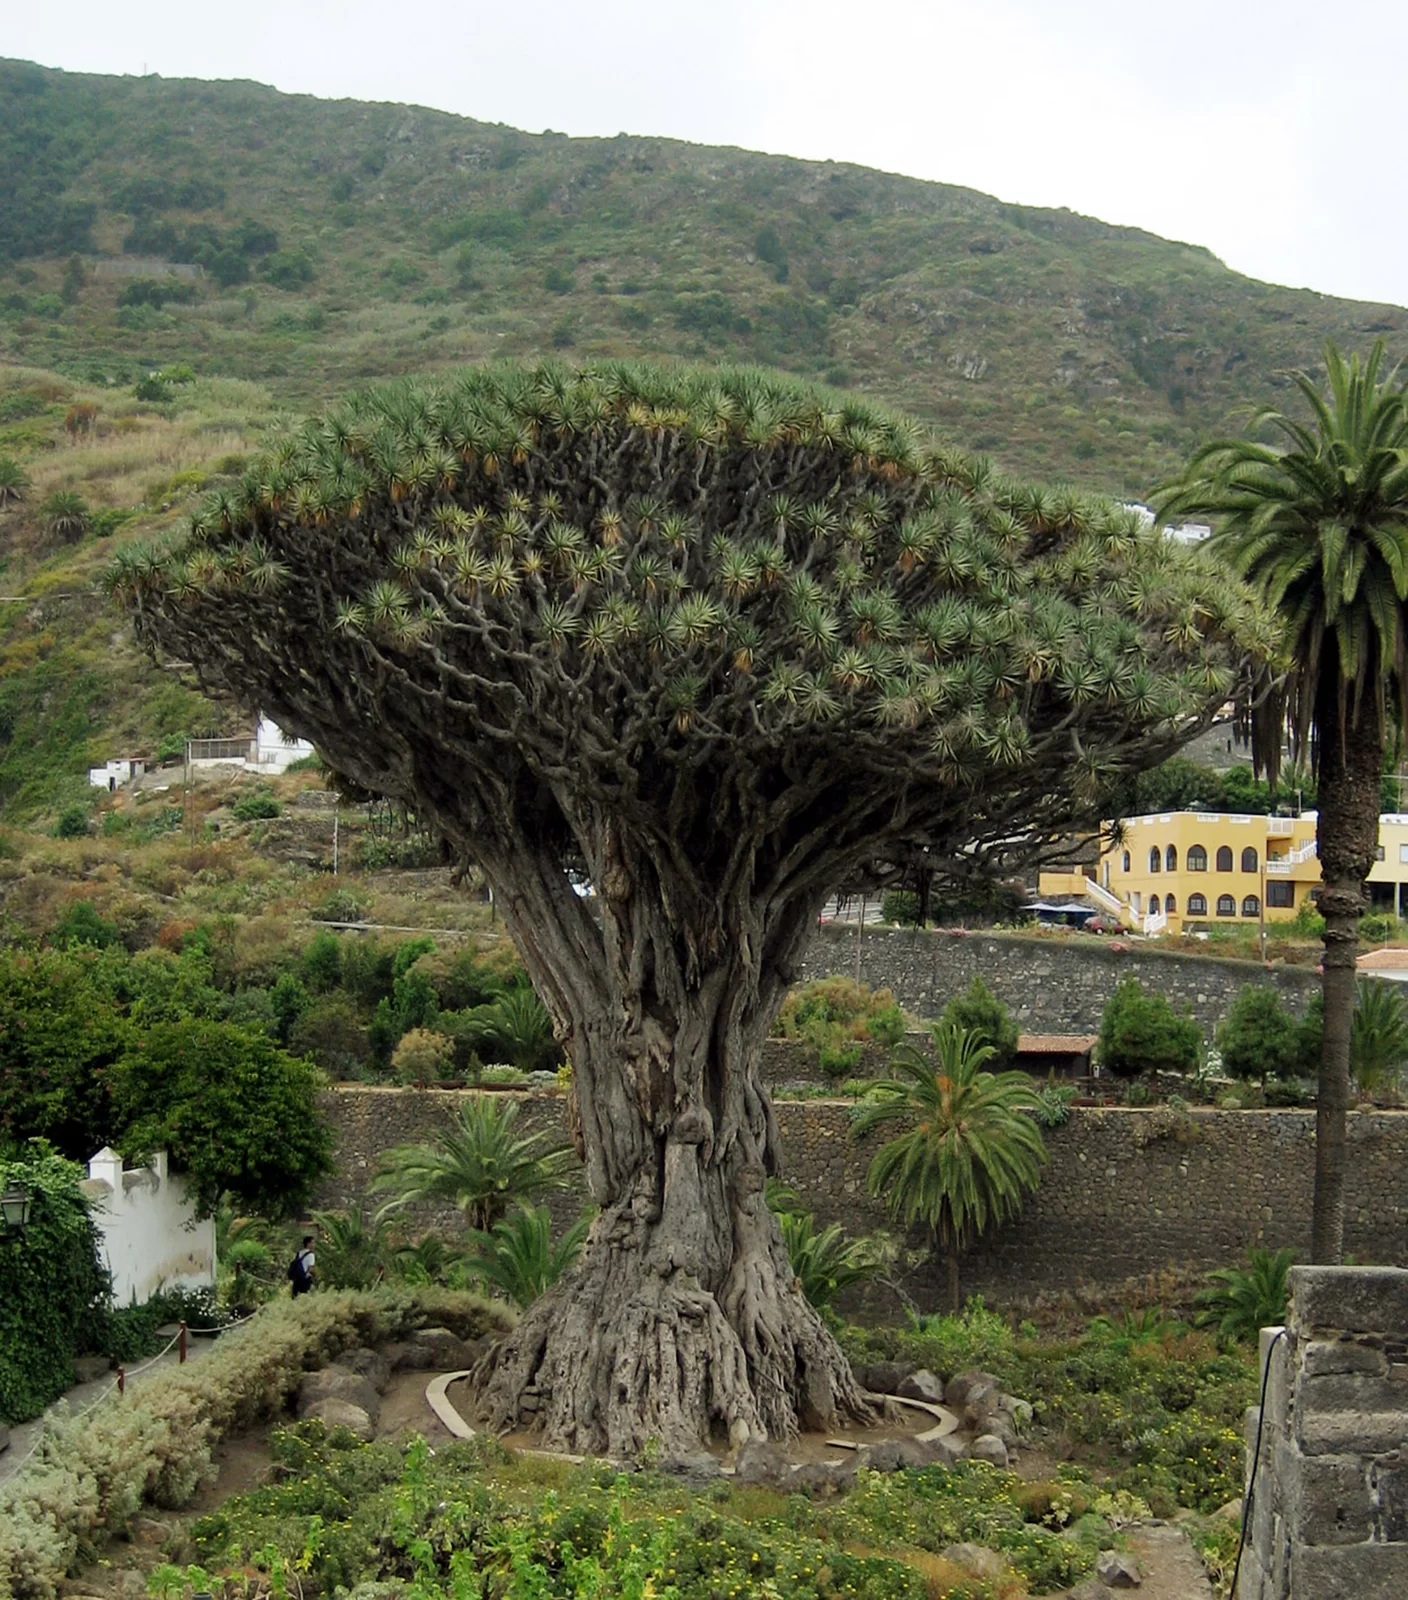
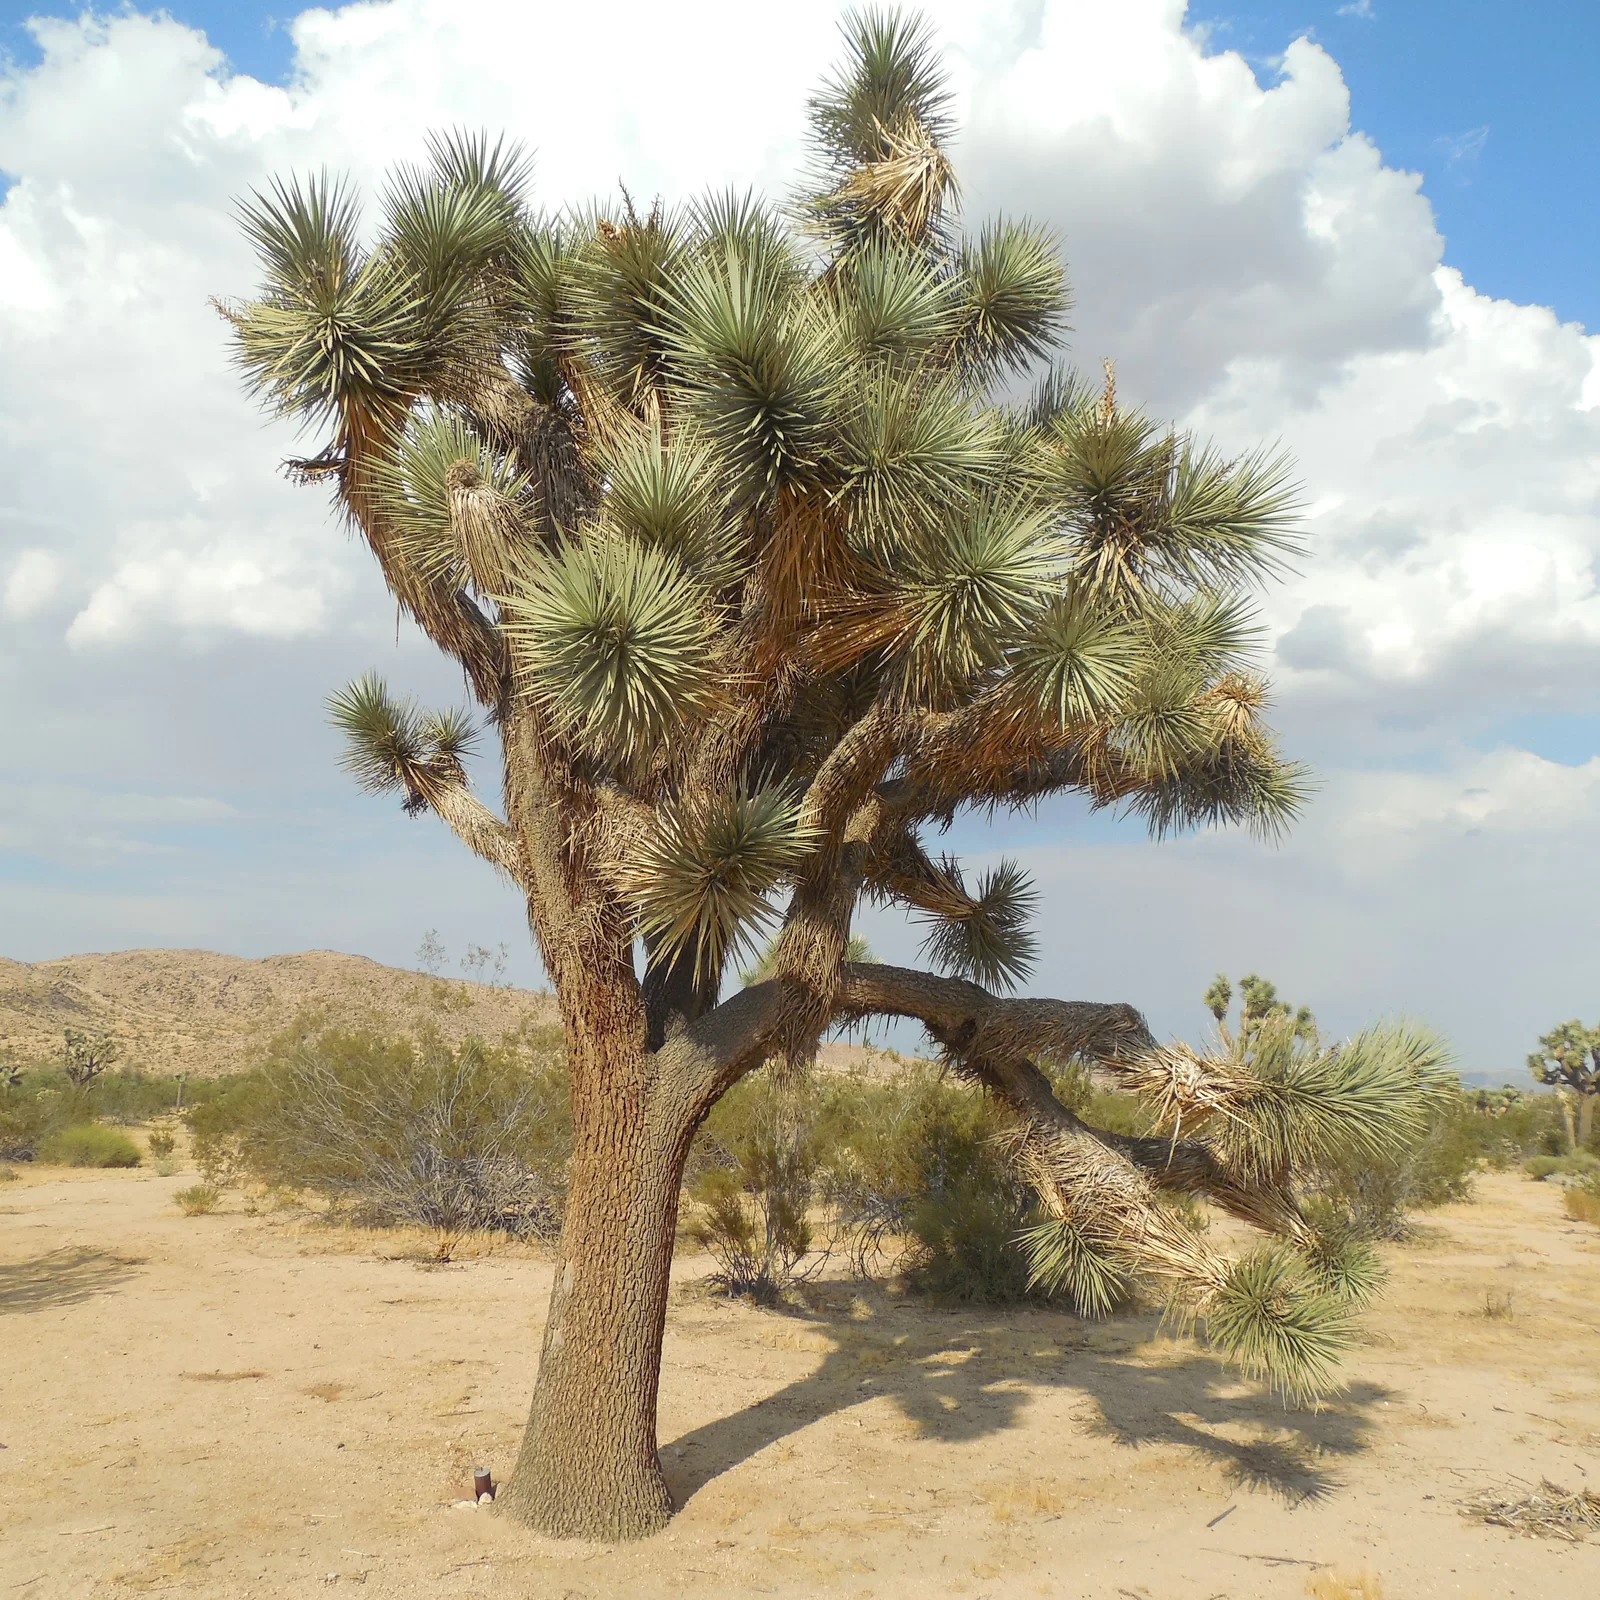
Kambium roślin jednoliściennych powstaje w wyniku odróżnicowania części komórek tkanki miękiszowej położonych na zewnątrz od pierwotnych wiązek przewodzących. Kambium anomalne przyjmuje postać ciągłego cylindra zbudowanego z wielu warstw ściśle przylegających do siebie wrzecionowatych komórek merystematycznych. Komórki te dzielą się równolegle do powierzchni organu (peryklinalnie), odkładając nowe pokłady komórek w dwóch kierunkach, dośrodkowo i odśrodkowo.
Częściej, dośrodkowo, odkładane są komórki dające początek wtórnej tkance miękiszowej i wtórnym wiązkom przewodzącym. U większości drzewiastych jednoliściennych nowo powstałe elementy tkanek przewodzących tworzą wiązki koncentryczne leptocentryczne.
Odśrodkowo – rzadziej – odkładane są komórki wtórnej tkanki miękiszowej. Zwiększająca się liczba wtórnych wiązek przewodzących oraz komórek miękiszu wtórnego powoduje właśnie przyrost na grubość łodygi niektórych roślin jednoliściennych. Dodatkowo pod epidermą część komórek miękiszu pierwotnego ulega odróżnicowaniu i uzyskuje zdolność do podziałów. Komórki te dzielą się peryklinalnie, tworząc kilkukomórkowe serie. Następnie ulegają suberynizacji (korkowaceniu), w wyniku czego powstaje korek piętrowy – specjalna wtórna tkanka okrywająca występująca jedynie u drzewiastych jednoliściennych.
Obejrzyj animację, a następnie wykonaj polecenia.
Film dostępny pod adresem /preview/resource/RId1JQSRKUJxg
Film pod tytułem "Łodygi roślin jednoliściennych i ich przyrost na grubość".
Klasyfikacja liści
Podział liści ze względu na stadium rozwojowe rośliny
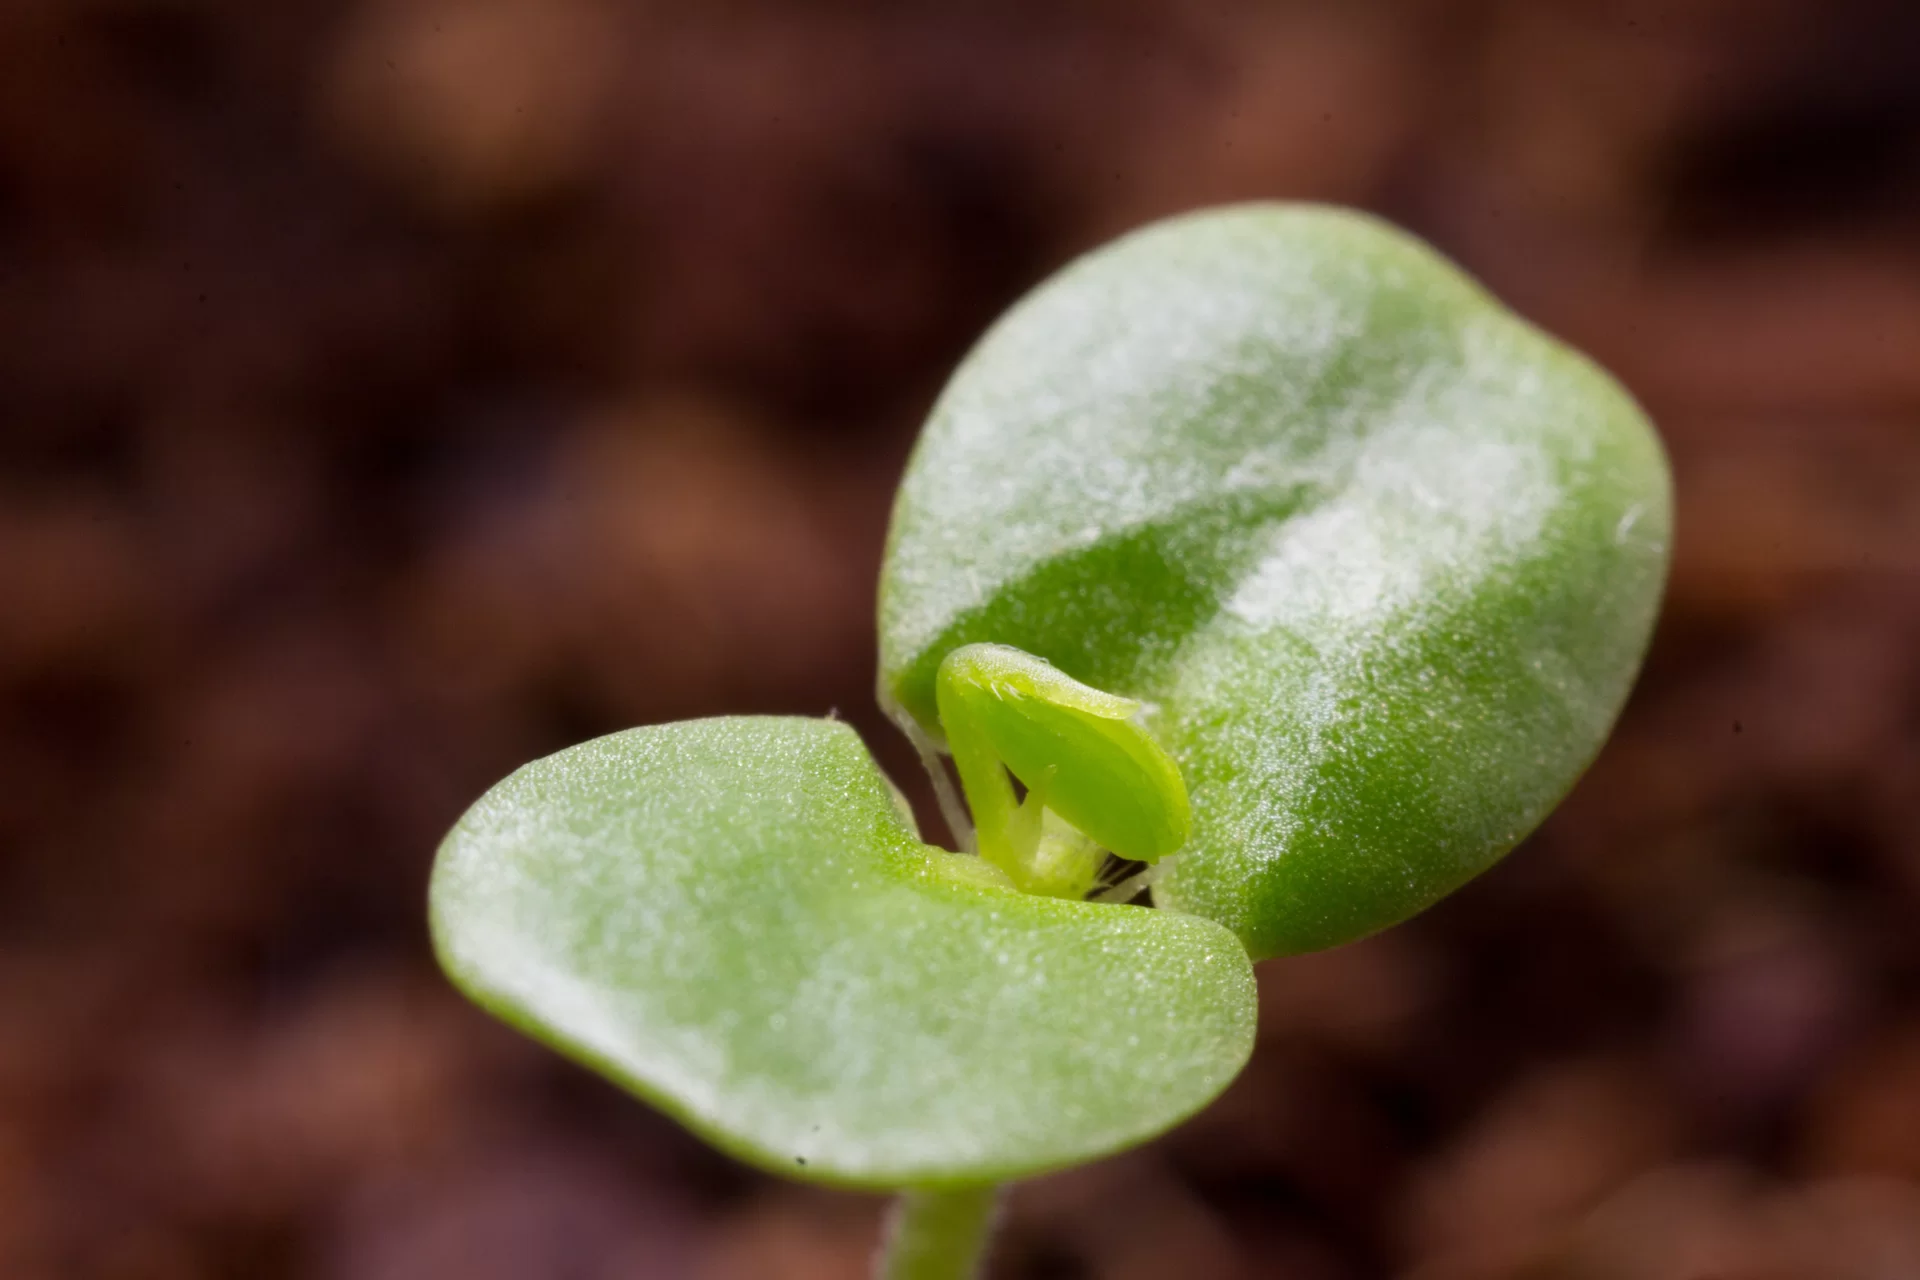
Liśćmi zarodkowymi roślin nasiennych są liścienie – zawiązują się one w nasieniu w trakcie rozwoju zarodka. W nasionach bielmowych i obielmowych liścienie są niewielkie i pośredniczą w przekazywaniu substancji pokarmowych między tkanką zapasową a zarodkiem. W nasionach bezbielmowych liścienie są duże i pełnią funkcję organów spichrzowych. U roślin kiełkujących nadziemnie (epigeicznie) liście zarodkowe wydostają się ponad powierzchnię gleby, zazieleniają się i przez pewien czas pełnią funkcję asymilacyjną.
Rośliny nagonasienne wykształcają dwa lub więcej liścieni. Rośliny okrytonasienne jednoliścienne mają jeden liść zarodkowy, a rośliny okrytonasienne dwuliścienne – dwa.
Liście dolne są pierwszymi liśćmi rozwijającymi się w dolnych częściach pędu u niektórych gatunków roślin. Mają postać drobnych, bezogonkowych, łuskowatych zielonych tworów, wyrastających na pędzie tuż nad powierzchnią podłoża.
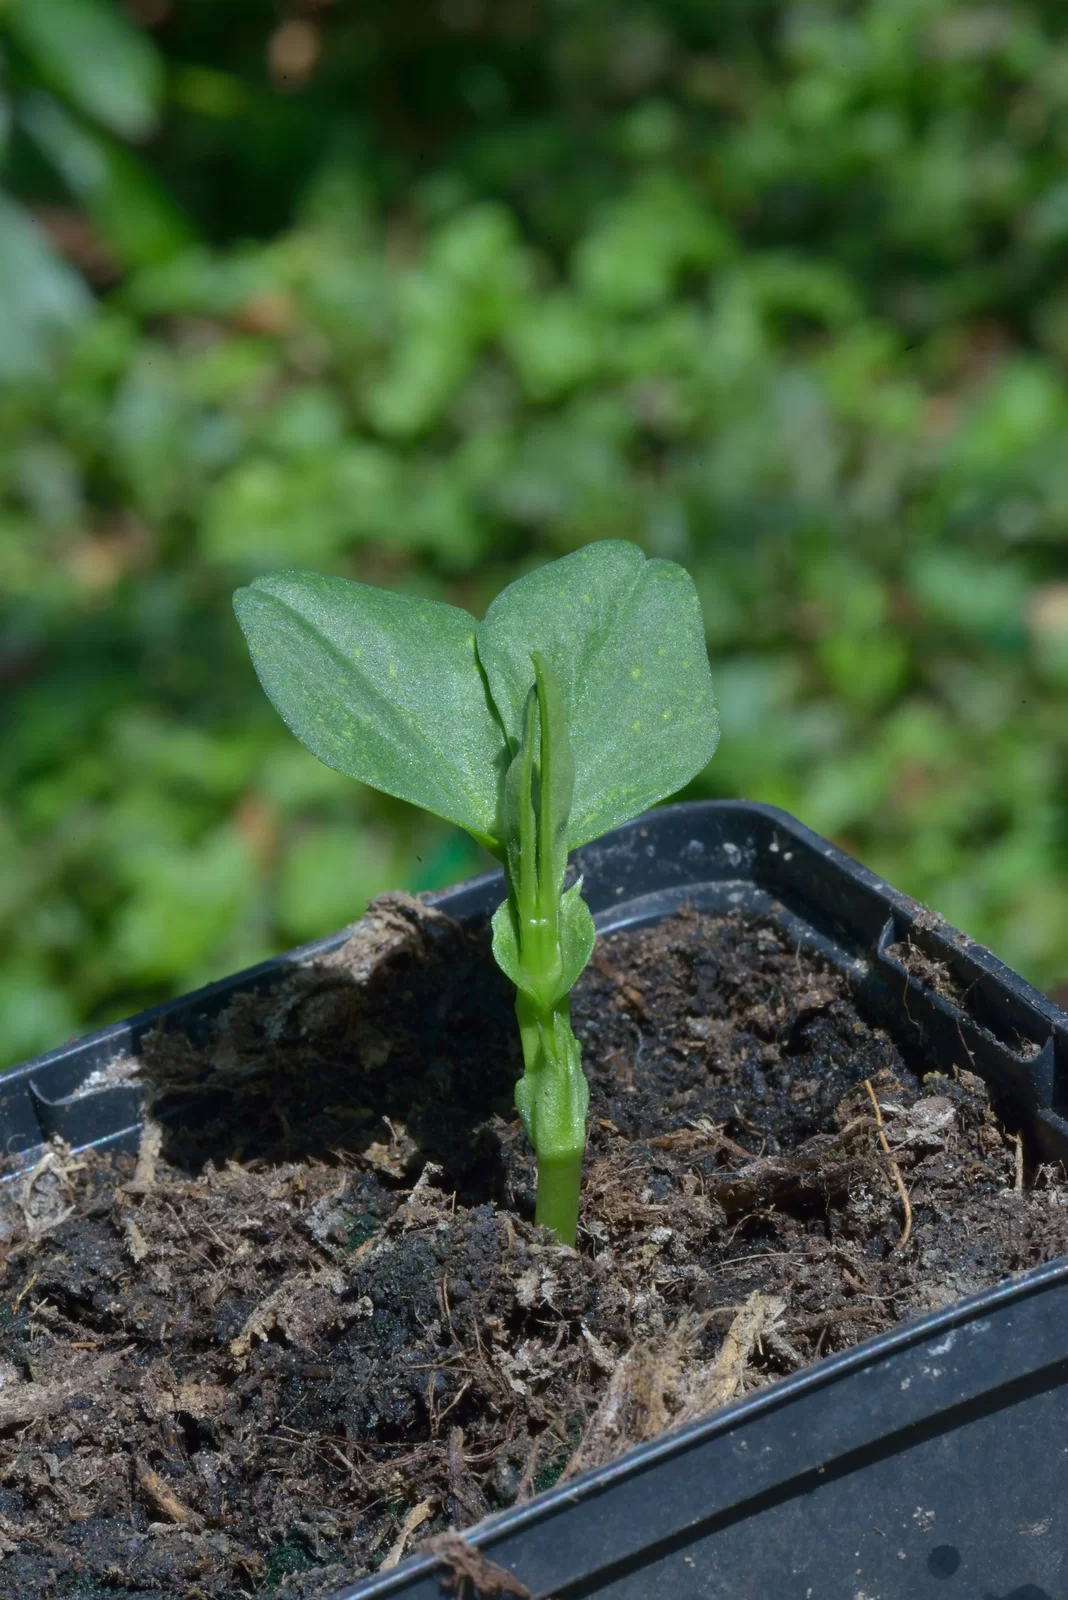
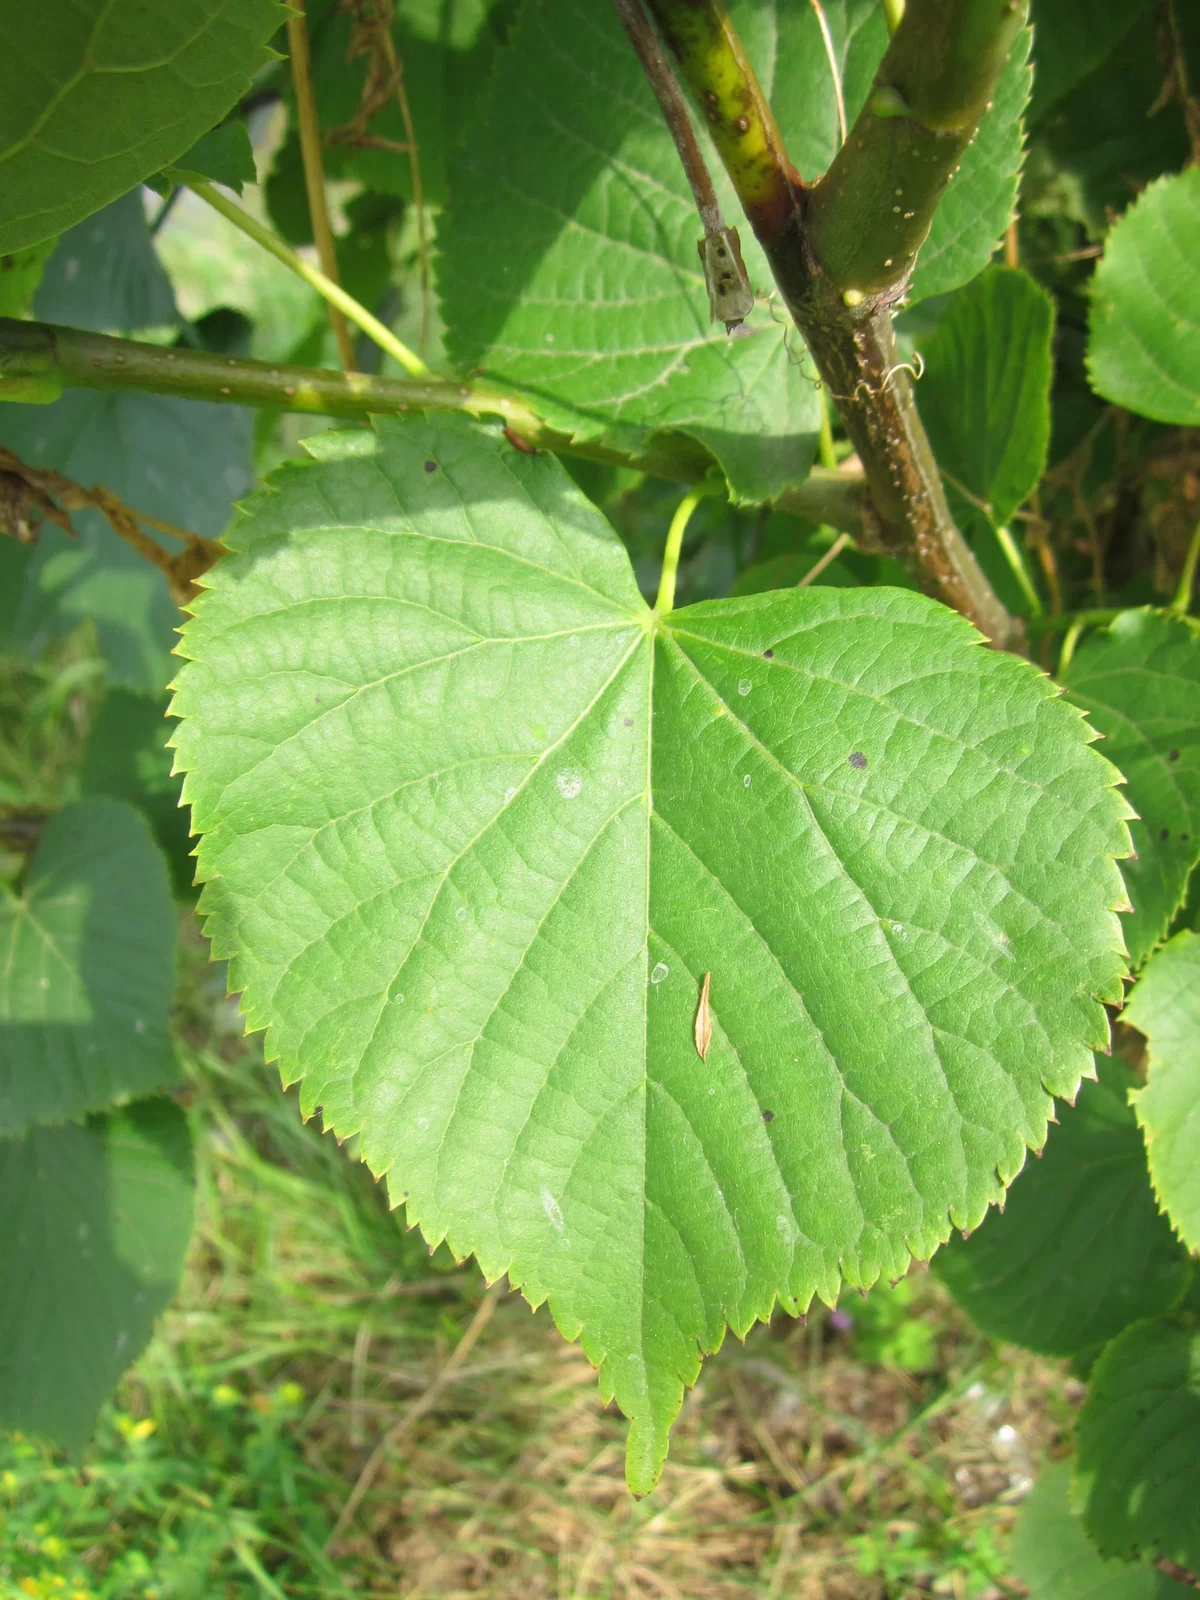
Liście właściwe wyrastają nad liśćmi dolnymi lub bezpośrednio nad liścieniami. Formy młodociane liści właściwych są mniej zróżnicowane i mają prostszy kształt od wyrastających nad nimi dojrzałych form liści właściwych. Formy dojrzałe odznaczają się wielką różnorodnością budowy, która zależy od przynależności systematycznej rośliny. Z tego powodu wykorzystuje się je często do identyfikacji danego gatunku.
Liść właściwy składa się z blaszki liściowej, ogonka liściowego i nasady liścia. Blaszka stanowi jego główną część. Najczęściej jest zielona, cienka i grzbieto‑brzusznie spłaszczona, a jej górna strona jest ciemniejsza niż dolna. Blaszka liściowa jest rozpięta na rusztowaniu zbudowanym przez system wiązek przewodzących, tworzących tzw. użyłkowanie (nerwację) liścia.
Ogonek liściowy występuje u liści ogonkowych i łączy blaszkę z nasadą. Dzięki jego obecności blaszka liściowa jest uniesiona i odsunięta od łodygi, co zapewnia jej lepszy dostęp do światła. Liście roślin jednoliściennych są zazwyczaj pozbawione ogonków (tzw. liście bezogonkowe, inaczej siedzące).
Nasada ma przeważnie postać rozszerzonej i spłaszczonej części łączącej liść z łodygą. Może być różnie wykształcona: od form nieznacznych po silnie rozwinięte pochwy liściowe.
Głównymi funkcjami liści właściwych jest prowadzenie fotosyntezy, transpiracji i wymiany gazowej.
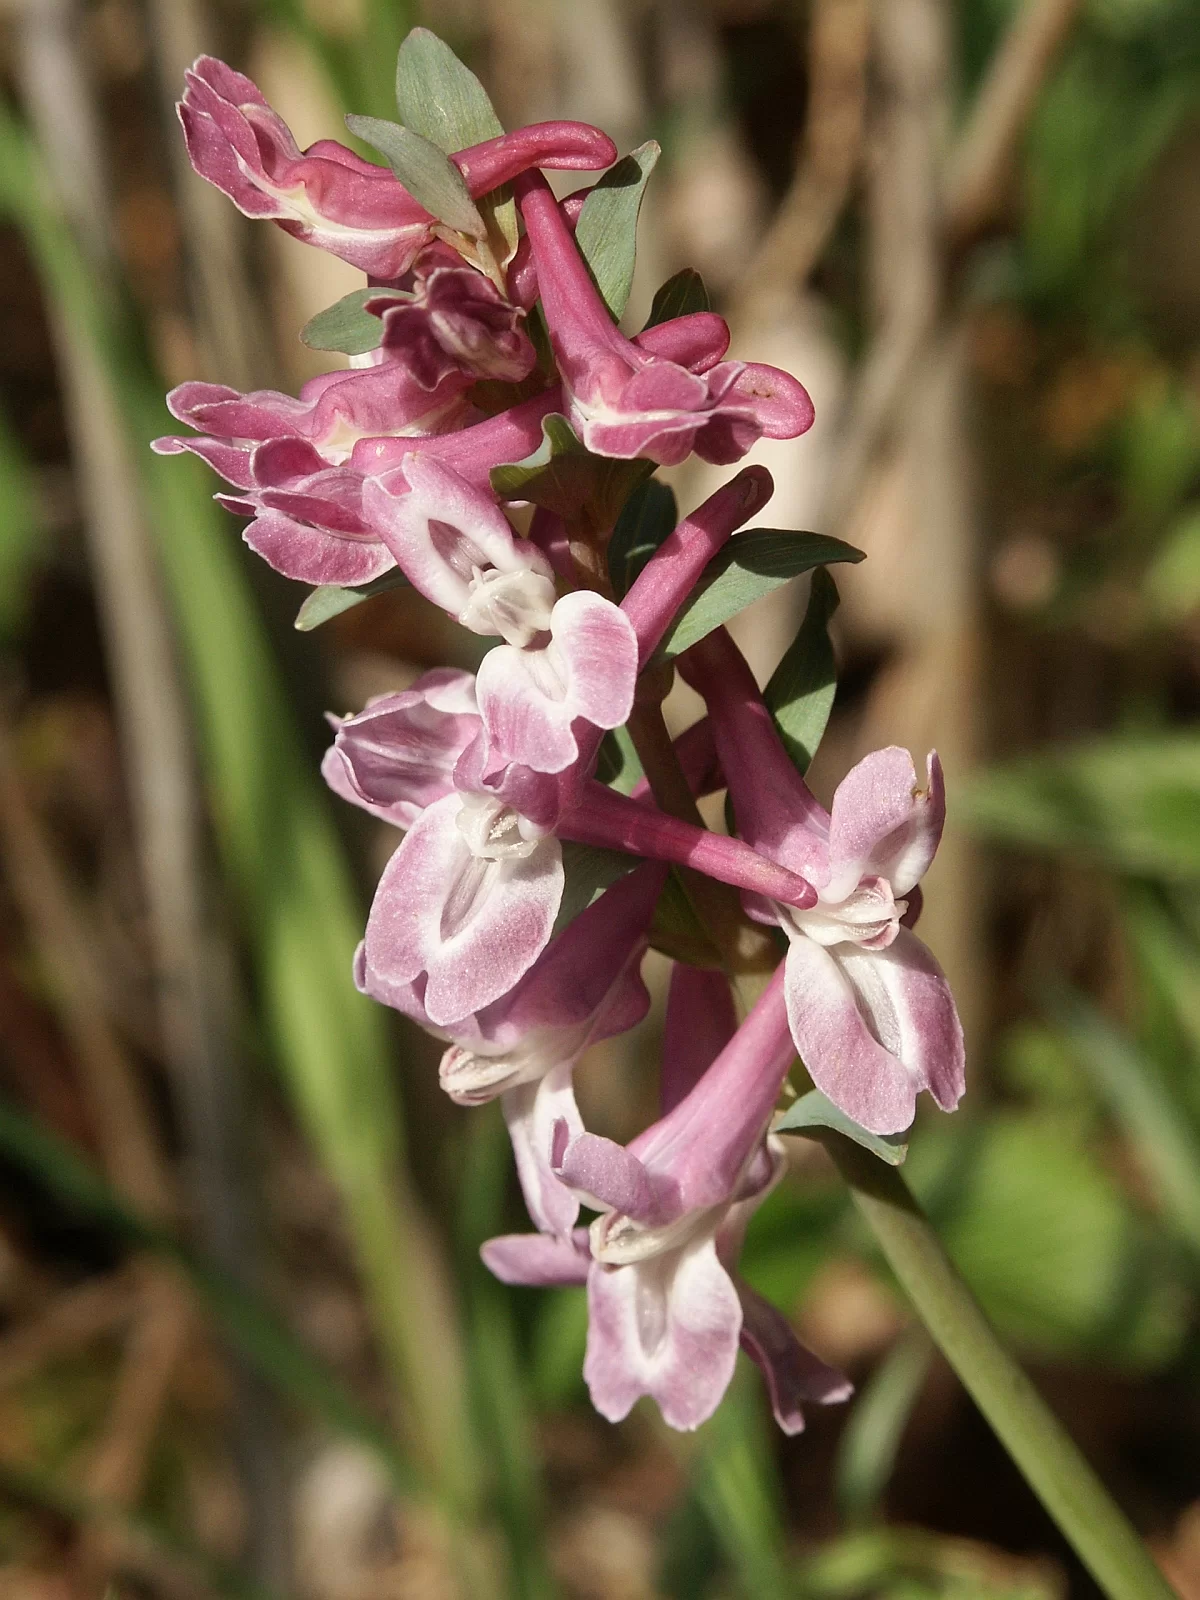
Liście przykwiatowe, inaczej liście górne, wyrastają nad liśćmi właściwymi w pobliżu kwiatów i kwiatostanów. W porównaniu z liśćmi właściwymi są często zredukowane do tworów wspierających, występujących u podstawy kwiatów (przysadki), kwiatostanów (podsadki) i szypułek kwiatowych (podkwiatki).
Podział liści ze względu na pełnioną funkcję
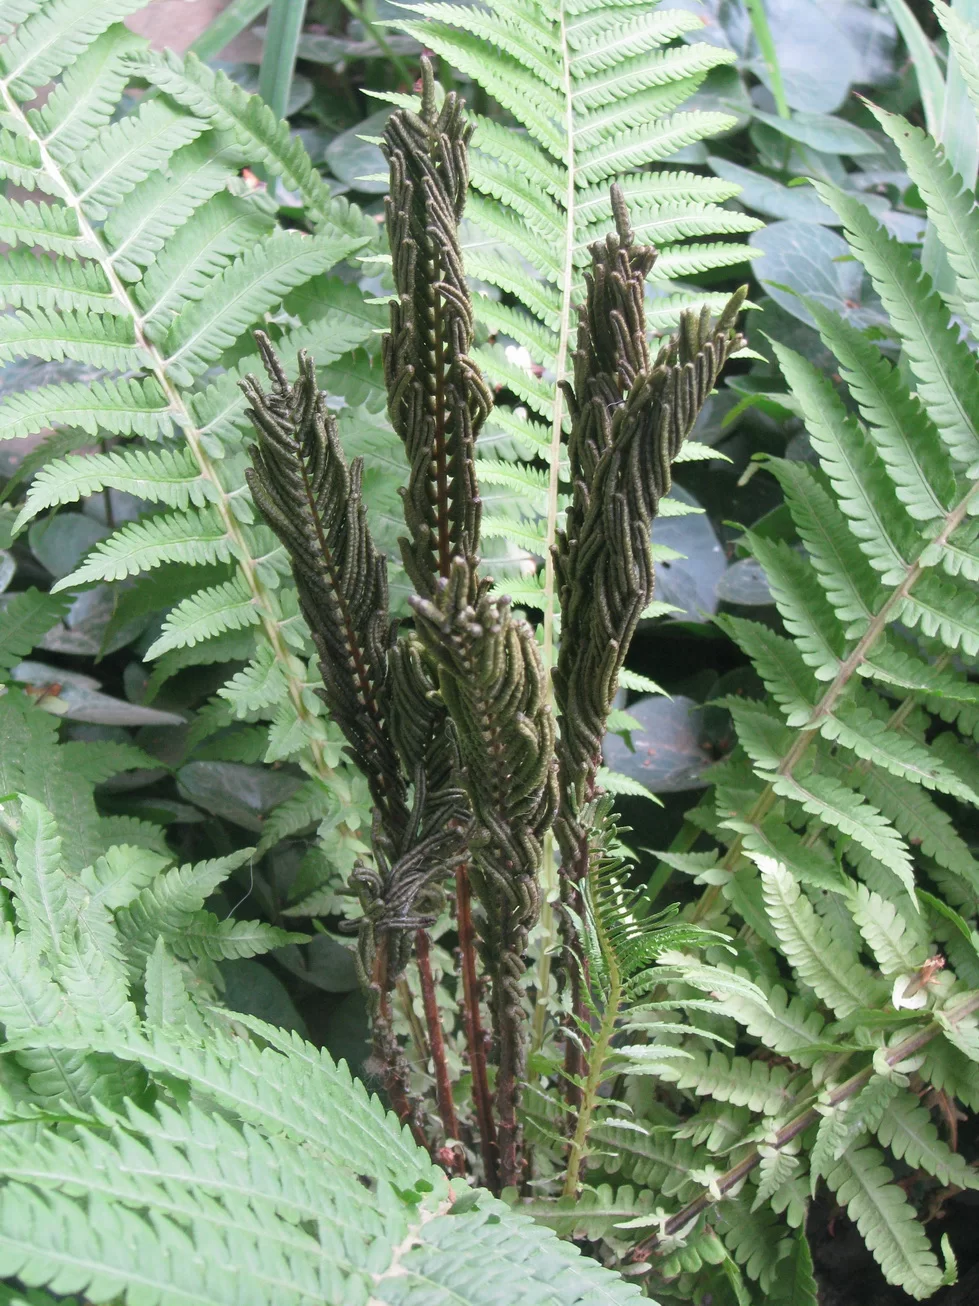
Sporofile (inaczej liście zarodnionośne) tworzone są przez diploidalne pokolenie roślin zwane sporofitem. Pełnią funkcje rozrodcze u zarodnikowych roślin naczyniowych (widłaków, skrzypów i niektórych paproci). Na sporofilach tworzą się zarodnie (sporangia), w których powstają haploidalne zarodniki (spory). Liście zarodnionośne zazwyczaj różnią się kształtem i budową od pozostałych liści. Mogą występować pojedynczo lub być zebrane w kłos zarodnionośny (strobil).
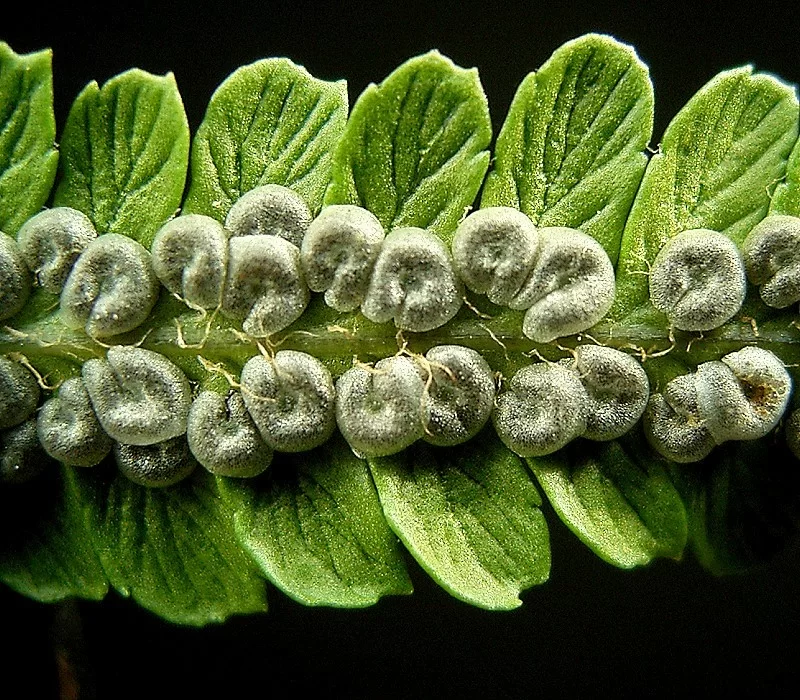
Trofofile (inaczej liście asymilacyjne) są odpowiedzialne za odżywianie się rośliny. Występują u zarodnikowych roślin naczyniowych (widłaków, skrzypów i niektórych paproci). U większości paproci liście asymilacyjne, po dolnej stronie blaszki liściowej, wykształcają zarodnie (sporangia). Pełnią wówczas podwójną funkcję i nazywane są trofosporofilami.
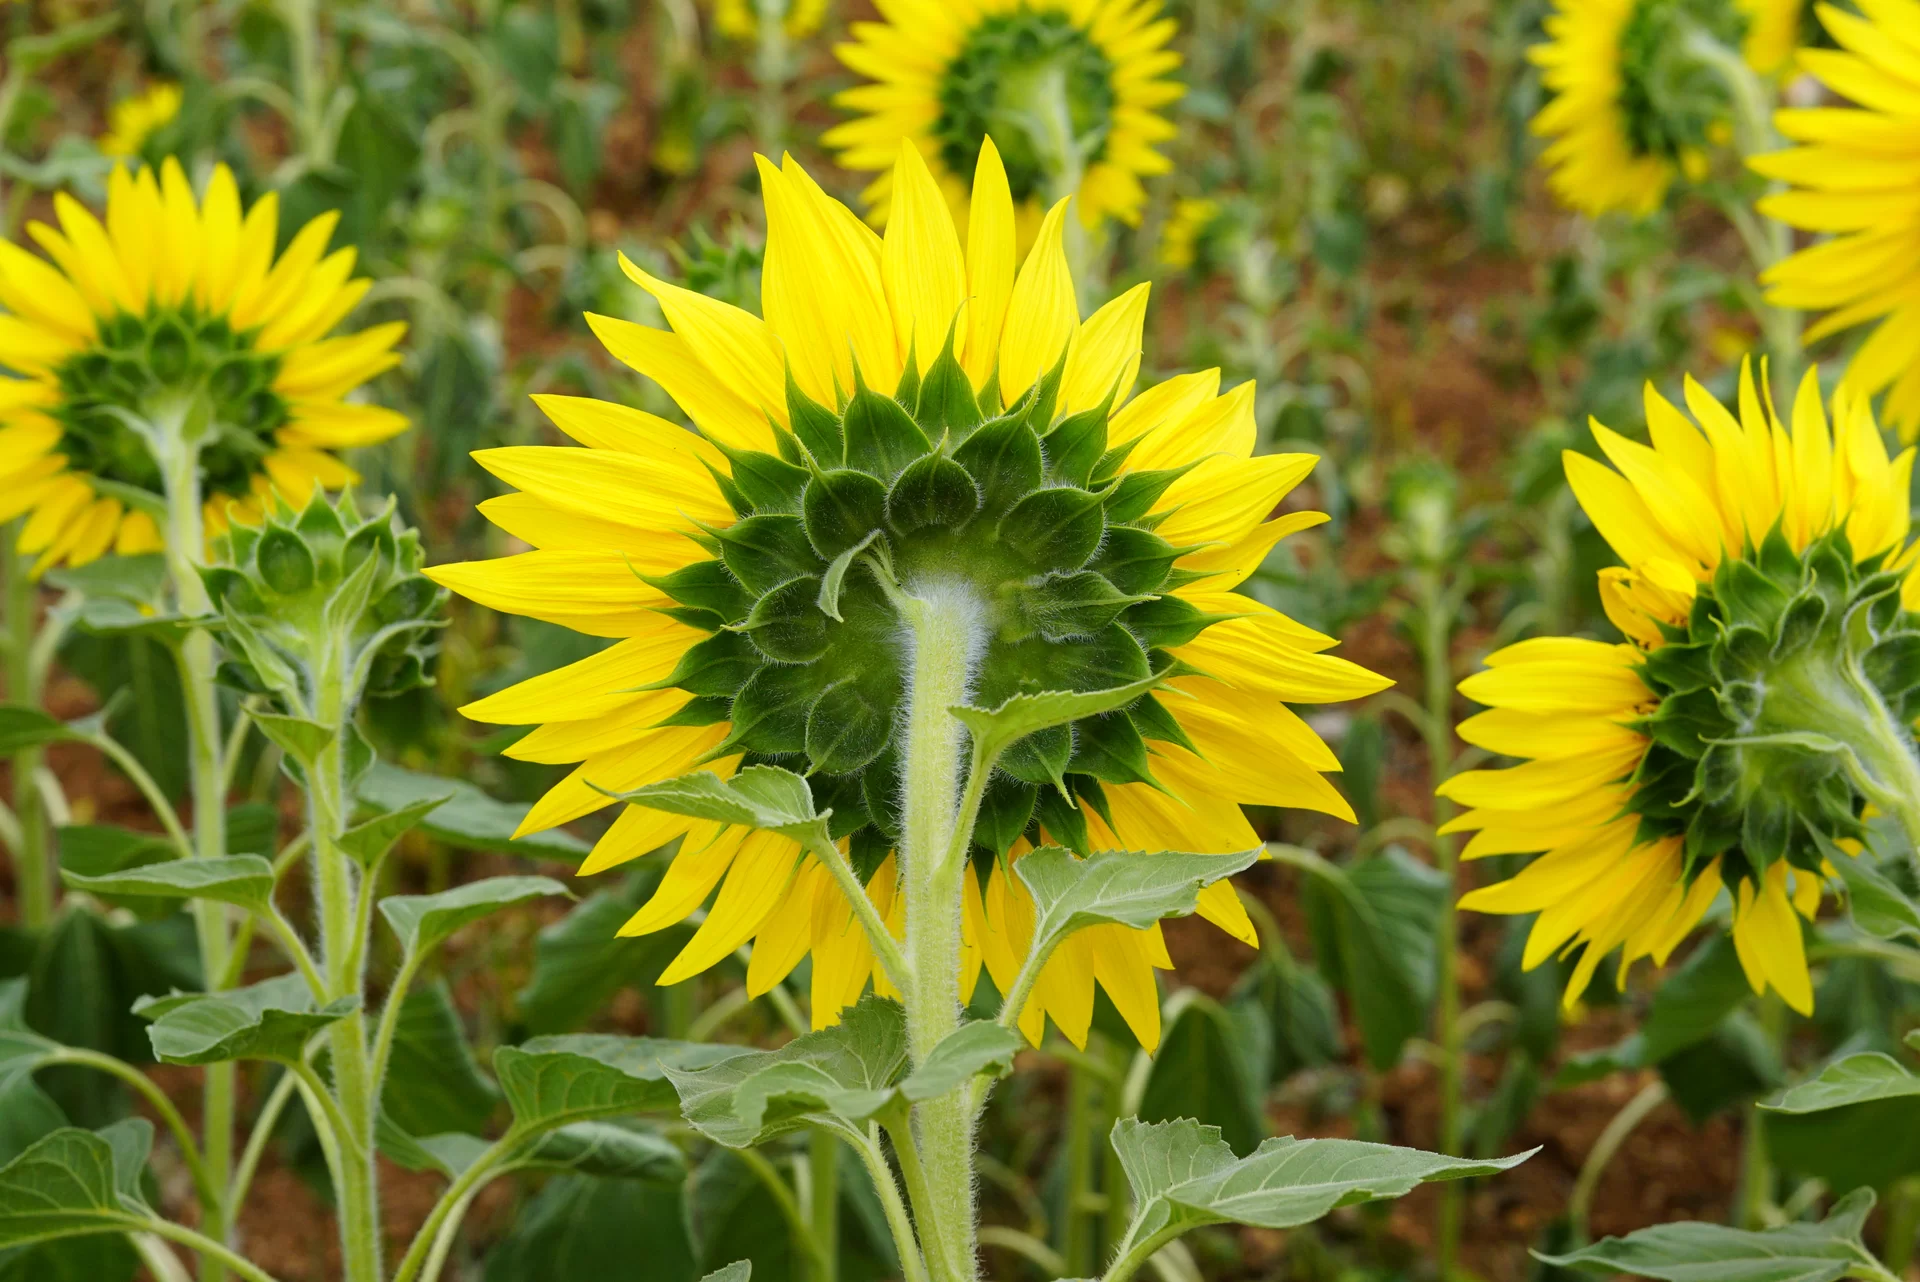
Liście przykwiatowe (inaczej przykwiatki) występują poniżej kwiatów i kwiatostanów. W porównaniu z liśćmi właściwymi ich budowa jest odmienna, a forma najczęściej silnie zredukowana. Pełnią funkcję wspierającą w stosunku do organów generatywnych rośliny. Niekiedy mają postać dużych, silnie rozwiniętych i barwnych tworów otaczających niepozorne kwiaty – wówczas pełnią funkcję powabni przyciągającej owady zapylające.
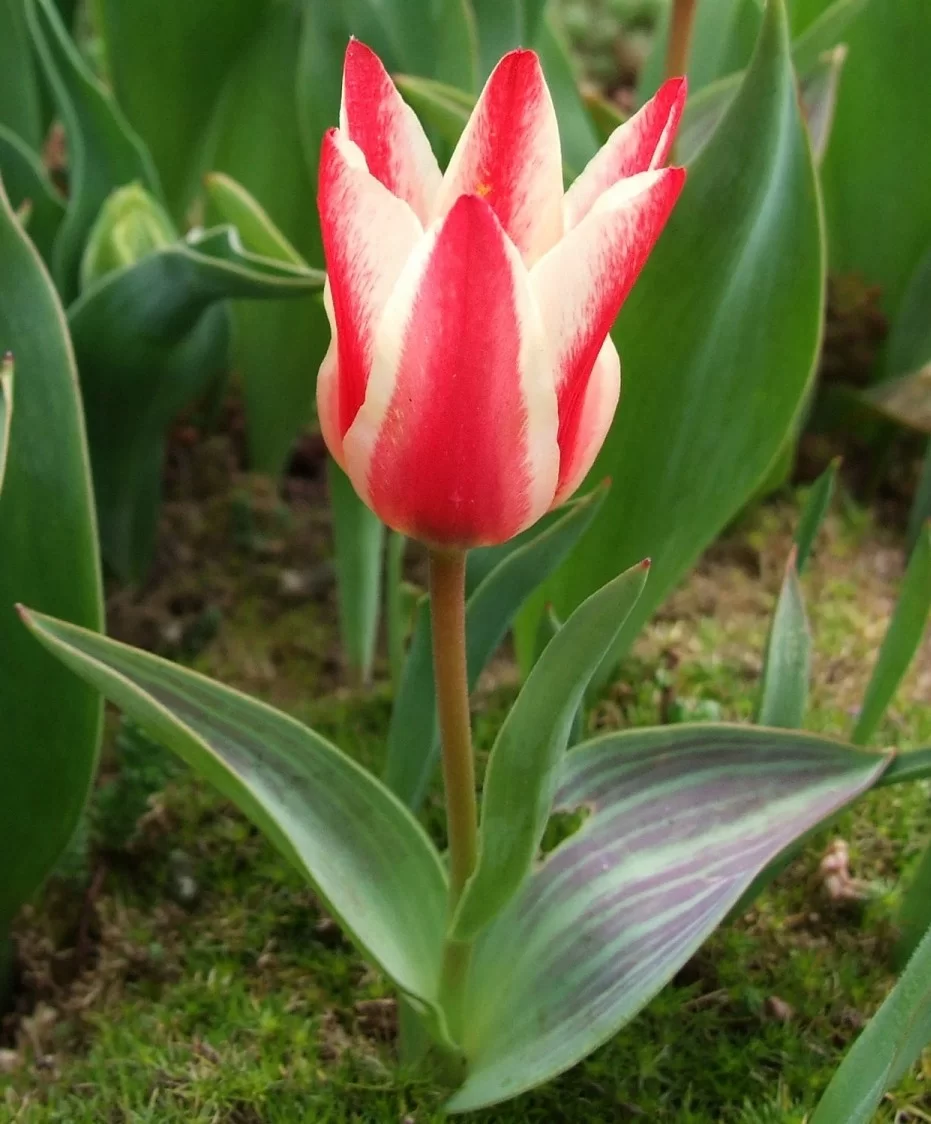
Liście kwiatowe (inaczej listki okwiatu) tworzą okrywę kwiatową. Okwiat może być pojedynczy – wtedy wszystkie elementy składowe, tzw. działki okwiatu, są jednakowe – lub podwójny – zróżnicowany na kielich i koronę. Elementy kielicha, tzw. działki, są zwykle zielone, a elementy korony, tzw. płatki – barwne. Liście kwiatowe pełnią funkcje ochronne dla pręcikowia i słupkowia obecnych wewnątrz kwiatu. W przypadku roślin owadopylnych barwne działki okwiatu lub płatki korony pełnią dodatkowo funkcję powabni, przyciągającej owady zapylające.
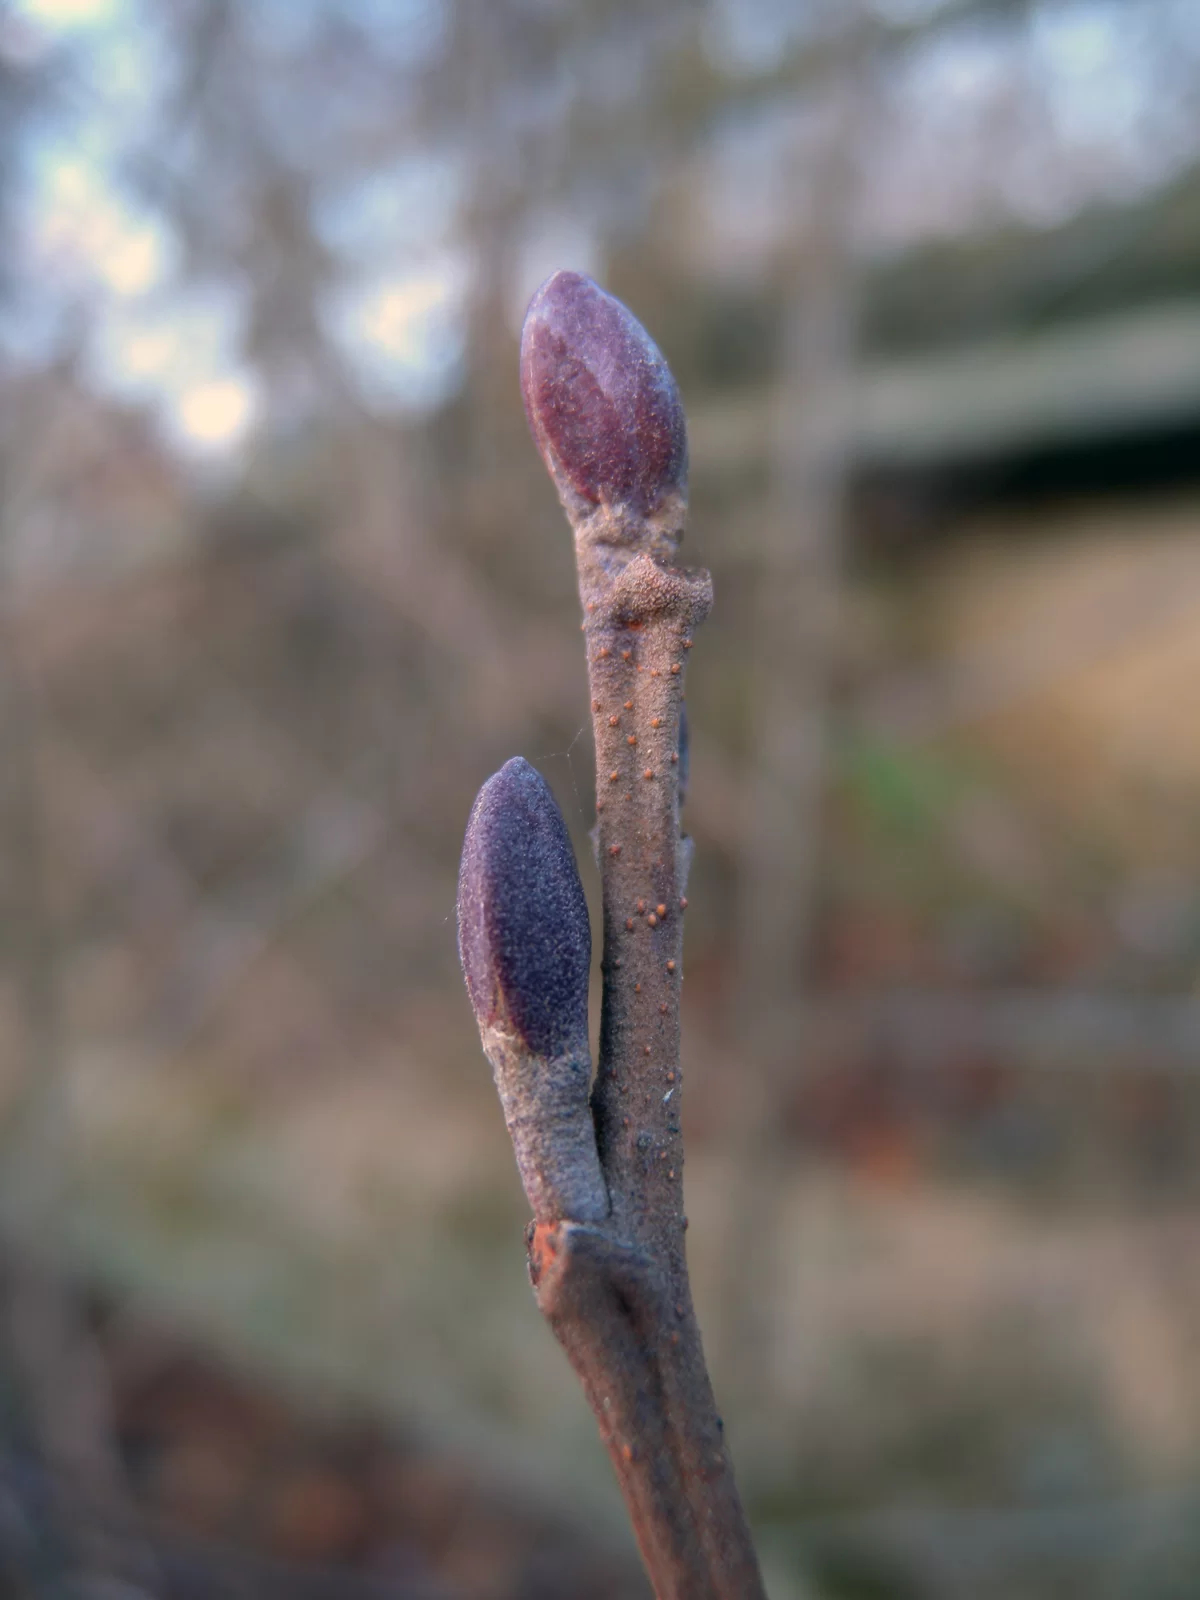
Liście pąkowe (inaczej łuski pąkowe) mają postać skórzastych, często pokrytych włoskami lub lepką wydzieliną tworów. Łuski pełnią funkcje ochronne dla zawiązków pędów liści lub kwiatów. Liczba liści pąkowych i sposób ich ułożenia są cechą taksonomiczną, dlatego ich obecność jest wykorzystywana do oznaczania przynależności gatunkowej drzew i krzewów w stanie bezlistnym.
Teoria stelarna
Stela to system ciągnących się w roślinie wiązek ksylemu i floemu wraz z otaczającymi je komórkami tkanki miękiszowej. Nazywana jest także walcem osiowym. Stele poszczególnych grup roślin różnią się ułożeniem względem siebie ksylemu (drewna), floemu (łyka) i tkanki miękiszowej. Zawsze jednak układ ten pełni tę samą funkcję: u roślin naczyniowych odpowiada za wzmacnianie organów roślinnych, transport wody z rozpuszczonymi składnikami mineralnymi od korzeni do pędów (ksylem) oraz transport cukrów jako produktów fotosyntezy z miejsca ich wytwarzania – najczęściej z liści do miejsca w roślinie, gdzie będą potrzebne, np. do korzeni, owoców (floem).
Korzeń
U współcześnie żyjących roślin najbardziej zewnętrzną częścią steli korzeni jest cylinder okolnicy (perycyklu), który składa się z kilku warstw komórek miękiszowych i czasem towarzyszących im komórek sklerenchymy. Najczęściej ksylem zajmuje centralną część korzenia, tworząc na przekroju poprzecznym kształt gwiazdy, między której ramionami znajduje się łyko. W zależności od liczby ramion takiej gwiazdy wyróżnia się np. jednopromienistą i wielopromienistą budowę korzeni. Tego typu walec osiowy określa się mianem aktynosteli.
Komórki ksylemu położone przy zewnętrznej części walca osiowego mają mniejszą średnicę i więcej zgrubień w stosunku do tych zlokalizowanych w jego wnętrzu. Na tej podstawie wyróżnia się protoksylem, którego komórki są mniejsze, występujący w młodych i rosnących organach, oraz metaksylem, obecny w organach, które zakończyły wzrost. Wewnątrz walca osiowego może znajdować się miękisz rdzeniowy.
Łodyga
Na przekroju poprzecznym łodyg również można wyróżnić walec osiowy, otoczony tkankami kory pierwotnej. Zewnętrzną część walca może stanowić okolnica z jednej lub kilku warstw tkanek miękiszowych (np. u paprotników), jednak u większości roślin okolnica nie występuje w łodydze. Układ tkanek przewodzących steli może być bardzo różny. U niższych roślin naczyniowych stanowi zwartą kolumnę. U roślin jednoliściennych najczęściej ma postać nieregularnie rozproszonych wiązek rozdzielonych przez miękisz zasadniczy – w tym przypadku nie można wyróżnić ani kory pierwotnej, ani walca osiowego. Natomiast u roślin nagozalążkowych i dwuliściennych tkanki przewodzące tworzą wiązki ułożone na przekroju na planie pierścienia, wewnątrz którego znajduje się rdzeń miękiszowy. Pierścień tkanek przewodzących występujący u paproci może być ciągły lub podzielony tzw. promieniami rdzeniowymi. Ułożenie ksylemu i floemu w łodydze ma charakter naprzeciwległy, w przeciwieństwie do korzenia, gdzie te tkanki położone są naprzemianlegle. Floem usytuowany jest zazwyczaj zewnętrznie w stosunku do ksylemu i może graniczyć z korą pierwotną.
Według teorii stelarnej tkanki przewodzące w walcu osiowym stanowią pewną całość, która przechodziła ewolucję wraz ze stopniowym rozwojem korpusu roślin naczyniowych, aż do osiągnięcia obecnie obserwowanych układów. Teoria ta odnosi się głównie do roślin nasiennych. Wciąż podlega ona szerokiej dyskusji.
Różne typy ukształtowania steli zgodnie z ewolucyjnymi etapami różnicowania zostały zestawione w poniższej tabeli.
Rodzaj walca osiowego | Typ steli | Występowanie | Cechy charakterystyczne |
Protostela | haplostela | pierwotne rośliny osiowe (psylofity), prymitywne paprotniki, mchy, wątrobowce | – najprostszy i najbardziej prymitywny typ steli |
aktynostela | prymitywne paprotniki (widłaki); stela charakterystyczna dla korzeni roślin okrytozalążkowych | – ksylem ułożony centralnie, tworzący wystające krawędzie ku obwodowi (promieniście ułożone ramiona) | |
plektostela | współczesne widłaki | – płytkowate pasma ksylemu | |
Syfonostela | syfonostela klasyczna | niektóre paprotniki | – pierścień floemu otacza położony w stosunku do niego wewnętrznie pierścień ksylemu – wewnątrz pierścienia tkanek przewodzących obecny jest miękiszowy rdzeń – pierścień ksylemu może być otoczony zarówno od zewnątrz, jak i od wewnątrz pierścieniami floemu – pierścienie ksylemu i floemu mogą być rozdzielone warstwą tkanki miękiszowej |
diktiostela | paprocie | – pierścień tkanek przewodzących przedzielony jest promieniami miękiszu odchodzącymi od rdzenia | |
Eustela | eustela klasyczna | rośliny nagozalążkowe i dwuliścienne | – wiązki łykodrzewne, kolateralne lub bikolateralne |
ataktostela | jednoliścienne | – rozproszony układ wiązek łykodrzewnych otoczonych tkanką miękiszu zasadniczego |
Film dostępny pod adresem /preview/resource/R13uayUWGwOWk
Film pod tytułem "Stela i jej przekształcenia".