Grafika przedstawia roślinę o zielonych, owalnych liściach.
Grafika przedstawia roślinę o zielonych, owalnych liściach.
Podsumowanie wątku 10
Proces fotosyntezy mogą przeprowadzać rośliny zielone (zawierające chlorofil), niektóre bakterie (część z nich zawiera bakteriochlorofil), a także niektóre protisty.
Źródło: Pixabay, domena publiczna.
Wejdź na wyższy poziom
Eksudacja a gutacja
Parcie korzeniowe jest przyczyną eksudacji – tzw. płaczu roślin, polegającego na wypływaniu soku roślinnego w wyniku uszkodzenia łodygi lub korzenia, np. po ich nacięciu. Zjawisko to jest właściwością nielicznych gatunków. U drzew klimatu umiarkowanego (np. klonów, brzóz, grabów) występuje ono wiosną przed rozwojem liści. Z kolei w klimacie tropikalnym, np. u palm, płacz roślin pojawia się tuż przed zakwitaniem.
Sok roślinny, który po odcięciu części nadziemnej wypływa z uszkodzonej powierzchni pędu (pnia) lub korzenia, charakteryzuje się wysokimi walorami odżywczymi. Aż 95% masy pozyskanego w ten sposób płynu stanowi woda, natomiast pozostałą część – cukry oraz składniki mineralne, m.in. miedź, cynk, wapń, magnez i fosfor. W soku mogą się również znajdować śladowe ilości niekorzystnych dla zdrowia związków: azotanów(V) czy siarczanów(VI) sodu.
Zjawisko „płaczu roślin” wykorzystywane jest do pozyskiwania soku z drzew, głównie z brzozy brodawkowatej (Betulapendula) i klonu zwyczajnego (Acer platanoides).
Sok z brzozy, zwany w Polsce oskołą, oprócz wody zawiera głównie fruktozę, a ponadto składniki mineralne. Spożywany jest zarówno w formie świeżej, jak i sfermentowanej, w postaci napoju niskoalkoholowego. Oskoła stosowana jest też w kosmetyce, jako środek oczyszczający i poprawiający kondycję skóry. Z kolei cukrem zawartym w soku klonowym jest głównie sacharoza. Uzyskany napój wykorzystywany jest w leczeniu nadciśnienia tętniczego i nieprawidłowego trawienia. W wyniku odparowania wody z soku powstaje syrop klonowy, którego produkcja kojarzy się przede wszystkim z Kanadą.
RCIftG0JGWc0e
Zdjęcie wykonano wczesną wiosną, w pogodny dzień. Przedstawia las klonowy. Na trawie leży niewielka ilość śniegu. Na drzewach, które nie mają jeszcze liści przymocowane są niewielkie, czarne wiadra. W tradycyjny sposób tak zbiera się oskołę, czyli sok z drzew. W tle widoczne są nieliczne drzewa iglaste.
Tradycyjne zbieranie soku klonowego.
Źródło: Bailiwick Studios, Flickr, licencja: CC BY-SA 2.0.
Parcie korzeniowe w warunkach wysokiej wilgotności powietrza, ograniczającej proces transpiracji, oraz jednoczesnego dostępu do dużych ilości wody zawartej w glebie objawia się gutacją. W przeciwieństwie do „płaczu roślin” polega ona na wydzielaniu kropli wody na brzegach liści, a nie z uszkodzonych organów. Woda wydostaje się przez struktury zwane hydatodami. Zjawisko to występuje najczęściej u młodych roślin, np. u zbóż, nasturcji, pokrzywy, kapusty.
RvmcIpLaGVD89
Na zdjęciu widoczne są liście truskawki. Składają się z trzech listków osadzonych na ogonku liściowym. Jeden listek znajduje się w znacznym zbliżeniu, jest mocno unerwiony i ma ząbkowane brzegi. Na każdym z ząbków znajduje się kropla przezroczystego płynu.
Gutacja na liściach truskawki (Fragaria × ananassa).
Przeprowadź doświadczenie w wirtualnym laboratorium biologicznym. Rozwiąż problem badawczy i zweryfikuj hipotezę. W formularzu zapisz swoje obserwacje i wyniki, a następnie sformułuj wnioski.
Zapoznaj się z opisem doświadczenia przeprowadzonego w wirtualnym laboratorium biologicznym. Rozwiąż problem badawczy i zweryfikuj hipotezę. W formularzu zapisz swoje spostrzeżenia i wyniki, a następnie sformułuj wnioski.
Problem badawczy: Czy wszystkie rośliny płaczą?
Hipoteza: Rośliny z nierozwiniętymi liśćmi, których łodyga została uszkodzona, płaczą.
Materiał biologiczny:
roślina z rozwiniętymi liśćmi,
roślina z nierozwiniętymi liśćmi.
Sprzęt laboratoryjny:
zlewki;
węże laboratoryjne;
żyletka.
REEXGEM68XD2E
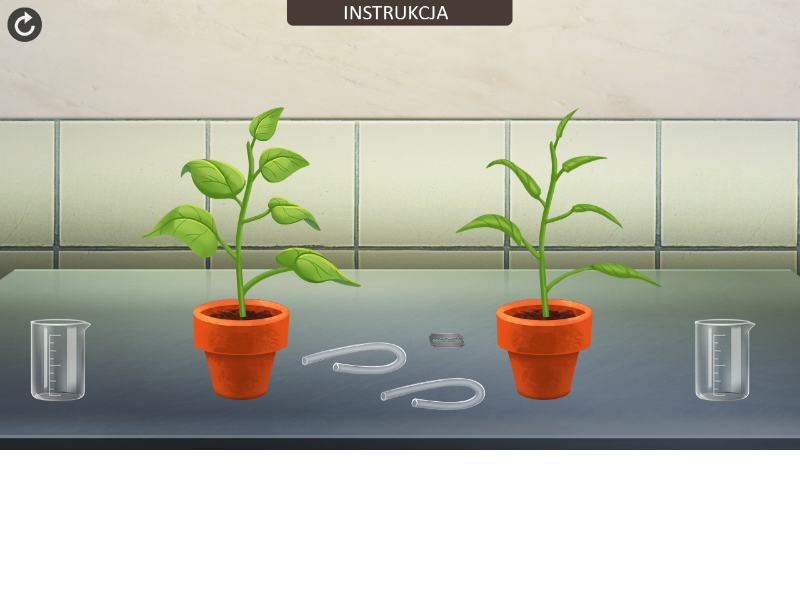
Na ilustracji interaktywnej przedstawiono stół laboratoryjny, na którym znajdują się dwie donice z roślinami zielonymi. Pierwsza roślina ma duże, rozwinięte liście, liście drugiej rośliny są niedorozwinięte. Na stole leżą również przypominające szklanki zlewki z miarkami oraz szklane węże laboratoryjne i metalowa żyletka. Przyrządy te będą niezbędne do zbadania zjawiska płaczu roślin. U góry obrazka przedstawiona jest instrukcja z następującymi punktami: 1. W łodygach obu roślin, w odległości kilku centymetrów od korzeni wytnij otwory, 2. Włóż do nich węże laboratoryjne, 3. Pod wyloty węży laboratoryjnych podstaw zlewki, 4. Zapisz wynik obserwacji. Po wykonaniu wszystkich opisanych w instrukcji czynności w wężu przymocowanym do łodygi rośliny niedorozwiniętej pojawia się płyn, który kroplami spływa do zlewki.
Na ilustracji interaktywnej przedstawiono stół laboratoryjny, na którym znajdują się dwie donice z roślinami zielonymi. Pierwsza roślina ma duże, rozwinięte liście, liście drugiej rośliny są niedorozwinięte. Na stole leżą również przypominające szklanki zlewki z miarkami oraz szklane węże laboratoryjne i metalowa żyletka. Przyrządy te będą niezbędne do zbadania zjawiska płaczu roślin. U góry obrazka przedstawiona jest instrukcja z następującymi punktami: 1. W łodygach obu roślin, w odległości kilku centymetrów od korzeni wytnij otwory, 2. Włóż do nich węże laboratoryjne, 3. Pod wyloty węży laboratoryjnych podstaw zlewki, 4. Zapisz wynik obserwacji. Po wykonaniu wszystkich opisanych w instrukcji czynności w wężu przymocowanym do łodygi rośliny niedorozwiniętej pojawia się płyn, który kroplami spływa do zlewki.
Źródło: Englishsquare.pl Sp. z o.o., licencja: CC BY-SA 3.0.
Na ilustracji interaktywnej przedstawiono stół laboratoryjny, na którym znajdują się dwie donice z roślinami zielonymi. Pierwsza roślina ma duże, rozwinięte liście, liście drugiej rośliny są niedorozwinięte. Na stole leżą również przypominające szklanki zlewki z miarkami oraz szklane węże laboratoryjne i metalowa żyletka. Przyrządy te będą niezbędne do zbadania zjawiska płaczu roślin. U góry obrazka przedstawiona jest instrukcja z następującymi punktami: 1. W łodygach obu roślin, w odległości kilku centymetrów od korzeni wytnij otwory, 2. Włóż do nich węże laboratoryjne, 3. Pod wyloty węży laboratoryjnych podstaw zlewki, 4. Zapisz wynik obserwacji. Po wykonaniu wszystkich opisanych w instrukcji czynności w wężu przymocowanym do łodygi rośliny niedorozwiniętej pojawia się płyn, który kroplami spływa do zlewki.
Szczegóły zjawiska 1greenwhite
Tak zwany płacz roślin, czyli wypływanie soku roślinnego z miejsca uszkodzenia łodygi, jest wynikiem działania parcia korzeniowego.
Szczegóły zjawiska 2bluewhite
Parcie korzeniowe to ciśnienie płynu powstające w tkankach korzenia, odpowiedzialne za tłoczenie wody i rozpuszczonych w niej substancji w naczyniach tkanki przewodzącej w górę rośliny.
Szczegóły zjawiska 3redwhite
Parcie korzeniowe odgrywa szczególną rolę u roślin, u których transpiracja jest ograniczona – m.in. roślin, których liście nie są jeszcze rozwinięte, lub rosnących w warunkach chłodnego i wilgotnego powietrza.
RaKRmc9tiAvpk
Analiza: Jakie rośliny płaczą?.
Obserwacje
Przyjrzyj się, która zlewka napełnia się płynem.
Wnioski
Zwróć uwagę na liście obu roślin.
Obserwacje
Zlewka przystawiona do rośliny z nierozwiniętymi liśćmi napełniła się płynem.
Wnioski
Płacz roślin obserwuje się po uszkodzeniu łodygi roślin, których liście jeszcze się nie rozwinęły.
Polecenie 1
RDHCT2setEJ9v
Wskaż wspólną cechę „płaczu roślin” i gutacji. (Uzupełnij).
Barwniki fotosyntetyczne
Barwniki fotosyntetyczne to organiczne związki chemiczne uczestniczące w procesie fotosyntezy. Odpowiedzialne są za pochłanianie (inaczej: absorpcję) promieniowania elektromagnetycznego w zakresie światła widzialnego i uwalnianie elektronów. Dzieli się je na: chlorofile i bakteriochlorofile, karotenoidy i fikobiliny. Różnią się one budową, zakresem absorbowanego światła widzialnego oraz pełnionymi funkcjami.
Chlorofile to zielone barwniki pochłaniające światło widzialne w zakresie fal niebieskich i czerwonych. Światło w zakresie fal zielonych ulega jedynie odbiciu od cząsteczek barwnika – właśnie to sprawia, że rośliny są zielone.
R15jxX9948w8R
Wykresy przedstawiają dwa widma absorpcyjne chlorofilu. Zjawisko absorpcji to proces pochłaniania energii fali elektromagnetycznej przez substancję. Chlorofil ma zdolność absorbowania kwantów światła czerwonego i niebieskiego. Na wykresie po lewej stronie przedstawiono widmo absorpcyjne chlorofilu a. Wyznacza je zielona krzywa. Na wykresie po prawej stronie fioletowa krzywa wyznacza to widmo dla chlorofilu b. Maksimum absorpcji dla chlorofilu a wynosi: czterysta trzydzieści i sześćset sześćdziesiąt dwa nanometry. Maksimum absorpcji dla chlorofilu b wynosi: czterysta pięćdziesiąt dwa i sześćset czterdzieści dwa nanometry. Po raz pierwszy widmo absorpcyjne chlorofilu wyznaczył w tysiąc osiemset osiemdziesiątym trzecim roku niemiecki biolog Theodor Wilhelm Engelmann.
Widmo absorpcyjne chlorofilu.
Źródło: Englishsquare.pl Sp. z o.o., licencja: CC BY 3.0.
Chlorofile nie są jednorodną grupą barwników fotosyntetycznych – wyróżnia się kilka ich rodzajów: a, b, c, d oraz barwniki pokrewne, takie jak bakteriochlorofile: a, b, c, d, e i g. Głównymi barwnikami fotosyntetycznymi są chlorofil a oraz bakteriochlorofil a. Pozostałe rodzaje chlorofili i bakteriochlorofili są barwnikami dodatkowymi i pełnią funkcje pomocnicze w fotosyntezie.
Chlorofil a występuje w komórkach sinic, protistów roślinopodobnych i roślin.
R1165iwaYC2Dl
Ilustracja interaktywna Ilustracja przedstawiająca strukturę chlorofili, będących związkami kompleksowymi. Atom centralny stanowi magnez na drugim stopniu utlenienia. Związany jest on z czterema pierścieniami pirolu, czyli heteroaromatycznymi pięcioczłonowymi pierścieniami z wbudowanym atomem azotu oraz dwoma wiązaniami podwójnymi pomiędzy atomami węgla. Pierścienie pirolowe połączone są ze sobą mostkami metinowymi, to jest grupami C H, od których z jednej strony odchodzi wiązanie pojedyncze, zaś z drugiej podwójne. Pierścienie pirolowe są modyfikowane różnymi grupami, w tym grupami metylowymi, etylowymi, winylowymi, pierścieniem 2‑karkoksylocyklopentanonu metylu, a także łańcuchem fitolowym, to jest nawias, dwa E, przecinek, siedem R, przecinek, jedenaście R, zamknięcie nawiasu-trzy,siedem,jedenaście,piętnaście-tetrametylo‑2-heksadeken‑1-olu. W przypadku chlorofilu A podstawnikiem przy jednym z pierścieni pirolowych jest grupa metylowa, zaś dla chlorofilu b jest to grupa aldehydowa C H O. 1. Układ porfirynowy Zbudowany jest z 4 pierścieni pirolowych. Pomiędzy atomami tworzącymi pierścień kształtują się naprzemiennie ułożone wiązania pojedyncze i podwójne, formujące tzw. układ wiązań sprzężonych, zdolny do absorpcji promieniowania świetlnego. W centrum układu porfirynowego znajduje się atom magnezu połączony z atomami azotu pierścieni pirolowych. Elektrony porfiryny ulegają wzbudzeniu pod wpływem światła absorbowanego przez układ wiązań sprzężonych., 2. Fitol Alkohol zbudowany z 20 atomów węgla. Wykazuje właściwości hydrofobowe, dzięki czemu wnika w dwuwarstwę fosfolipidową i zakotwicza cząsteczkę barwnika w błonie fotosyntetycznej., 3. Grupa metylowa Charakterystyczna dla chlorofilu a., 4. Grupa aldehydowa Charakterystyczna dla chlorofilu b.
Ilustracja interaktywna Ilustracja przedstawiająca strukturę chlorofili, będących związkami kompleksowymi. Atom centralny stanowi magnez na drugim stopniu utlenienia. Związany jest on z czterema pierścieniami pirolu, czyli heteroaromatycznymi pięcioczłonowymi pierścieniami z wbudowanym atomem azotu oraz dwoma wiązaniami podwójnymi pomiędzy atomami węgla. Pierścienie pirolowe połączone są ze sobą mostkami metinowymi, to jest grupami C H, od których z jednej strony odchodzi wiązanie pojedyncze, zaś z drugiej podwójne. Pierścienie pirolowe są modyfikowane różnymi grupami, w tym grupami metylowymi, etylowymi, winylowymi, pierścieniem 2‑karkoksylocyklopentanonu metylu, a także łańcuchem fitolowym, to jest nawias, dwa E, przecinek, siedem R, przecinek, jedenaście R, zamknięcie nawiasu-trzy,siedem,jedenaście,piętnaście-tetrametylo‑2-heksadeken‑1-olu. W przypadku chlorofilu A podstawnikiem przy jednym z pierścieni pirolowych jest grupa metylowa, zaś dla chlorofilu b jest to grupa aldehydowa C H O. 1. Układ porfirynowy Zbudowany jest z 4 pierścieni pirolowych. Pomiędzy atomami tworzącymi pierścień kształtują się naprzemiennie ułożone wiązania pojedyncze i podwójne, formujące tzw. układ wiązań sprzężonych, zdolny do absorpcji promieniowania świetlnego. W centrum układu porfirynowego znajduje się atom magnezu połączony z atomami azotu pierścieni pirolowych. Elektrony porfiryny ulegają wzbudzeniu pod wpływem światła absorbowanego przez układ wiązań sprzężonych., 2. Fitol Alkohol zbudowany z 20 atomów węgla. Wykazuje właściwości hydrofobowe, dzięki czemu wnika w dwuwarstwę fosfolipidową i zakotwicza cząsteczkę barwnika w błonie fotosyntetycznej., 3. Grupa metylowa Charakterystyczna dla chlorofilu a., 4. Grupa aldehydowa Charakterystyczna dla chlorofilu b.
Budowa cząsteczki chlorofilu.
Źródło: Englishsquare.pl Sp. z o.o., Wikimedia Commons, licencja: CC BY-SA 3.0.
Bakteriochlorofil a występuje w komórkach bakterii zielonych i purpurowych. Jego budowa przypomina strukturę chlorofilu. Różnice dotyczą niewielkich modyfikacji w układzie porfirynowym i rodzaju alkoholu, którym może być fitol lub geranylogeraniol.
R18yQrATfRCKF
Ilustracja przedstawiająca strukturę bakteriochlorofilu a, będącego związkiem kompleksowym. Atom centralny stanowi magnez na drugim stopniu utlenienia. Związany jest on z czterema pierścieniami pirolu, czyli heteroaromatycznymi pięcioczłonowymi pierścieniami z wbudowanym atomem azotu oraz dwoma wiązaniami podwójnymi pomiędzy atomami węgla. Pierścienie pirolowe połączone są ze sobą mostkami metinowymi, to jest grupami , od których z jednej strony odchodzi wiązanie pojedyncze, zaś z drugiej podwójne. Pierścienie pirolowe oraz mostki metinowe razem tworzą analog układu porfirynowego, który od chlorofili odróżnia układ wiązań podwójnych w pierścieniach pirolowych. Układ jest również sprzężony jak w przypadku chlorofili, jednak sprzężeniu ulega o jedno wiązanie podwójne mniej. Zatem dwudziestoelektronowy układ pi w chlorofilach, w przypadku bakteriochlorofili jest układem osiemnastoelektronowym. Ponadto pierścienie pirolowe są modyfikowane różnymi grupami, w tym grupami metylowymi, etylowymi, winylowymi, pierścieniem 2‑karkoksylocyklopentanonu metylu, a także łańcuchem fitolowym, to jest -,,,-tetrametylo‑2-heksadeken‑1-ol.
Budowa cząsteczki bakteriochlorofilu a.
Źródło: Englishsquare.pl Sp. z o.o., licencja: CC BY 3.0.
Karotenoidy to żółte, pomarańczowe i czerwone barwniki będące polimerami izoprenu. W cząsteczce barwnika obecne są dwa pierścienie cykloheksylowe połączone długim łańcuchem węglowym, w którym występuje układ sprzężonych wiązań podwójnych.
R1KXVO0HoyUAI
Wzór chemiczny przedstawia budowę cząsteczki beta karotenu. Zbudowany jest z czterdziestu atomów węgla, przy czym zawiera jedenaście sprzężonych podwójnych wiązań oraz dwa niesprzężone. Każdy węgiel jest połączony z trzema atomami wodoru.
Budowa cząsteczki beta‑karotenu.
Źródło: Wikimedia Commons, licencja: CC BY-SA 3.0.
Karotenoidy są dodatkowymi barwnikami fotosyntetycznymi, które absorbują światło widzialne w zakresie fal fioletowych i niebieskich. Oprócz tego nadają barwę kwiatom, owocom i nasionom. Do karotenoidów zalicza się: ksantofile – barwniki żółte i karoteny – barwniki pomarańczowe i czerwone.
REZZMW9KuOHLj
Zdjęcie przedstawia pomarańczowe korzenie marchewki. Za kolor warzywa odpowiada barwnik. Beta karoten. Marchew ma podłużny, zwężający się ku dołowi korzeń. Należy do rodziny selerowatych. Choć przyzwyczajeni jesteśmy przede wszystkim do pomarańczowej marchewki, marchew występuje w wielu wersjach kolorystycznych. Za ich kolor odpowiadają różne substancje, które sprawiają, że różnią się one między sobą, jeśli chodzi o wartości odżywcze. Na przykład, odmiana żółta jest źródłem beta‑karotenu, choć nie w tak dużej ilości jak pomarańczowa.
Beta‑karoten nadaje barwę korzeniom marchwi. Związek ten jest prowitaminą, z której organizm człowieka (w komórkach nabłonka jelita cienkiego) syntetyzuje witaminę A, niezbędną w procesie widzenia.
Fikobiliny to niebieskie i czerwone barwniki rozpuszczalne w wodzie, występujące u sinic i krasnorostów. Ich struktura przypomina budowę bilirubiny – barwnika występującego w żółci (substancji produkowanej i wydzielanej przez wątrobę). W cząsteczce fikobiliny obecny jest łańcuch zbudowany z czterech pierścieni pirolowych.
R1oHyyeQW2ZMt
Wzór chemiczny przedstawia budowę cząsteczki fikocyjanobiliny. Fikobiliny zbudowane są na podstawie szkieletu tetrapirolowego – otwartego łańcucha czterech pierścieni pirolowych.
Budowa cząsteczki fikocyjanobiliny.
Źródło: Englishsquare.pl Sp. z o.o., licencja: CC BY 3.0.
Fikobiliny są dodatkowymi barwnikami fotosyntetycznymi, które absorbują światło widzialne w zakresie fal zielonych, żółtych, pomarańczowych i czerwonych. Barwniki te łączą się z białkami, tworząc kompleksy: niebieski – fikocyjaninę i czerwony – fikoerytrynę.
Główne i dodatkowe barwniki fotosyntetyczne
Cząsteczki chlorofilu a i bakteriochlorofilu a, czyli głównych barwników fotosyntetycznych, są zdolne do uwalniania elektronów pod wpływem absorbowanego światła. Chlorofile b, c oraz d, karotenoidy i fikobiliny pełnią funkcję barwników pomocniczych, które tworząc tzw. układ antenowy wychwytują energię świetlną i przekazują ją do centrów reakcji fotosystemów, tworzonych przez cząsteczki chlorofilu a. Barwniki dodatkowe absorbują światło widzialne o innej długości fali niż główne barwniki fotosyntetyczne, dzięki czemu organizmy fotoautotroficzne mogą wykorzystywać do fotosyntezy szersze spektrum światła widzialnego. Ponadto karotenoidy spełniają funkcje ochronne, przeciwdziałając fotooksydacji całego aparatu fotosyntetycznego.
Lokalizacja barwników fotosyntetycznych
W komórkach prokariotycznych barwniki fotosyntetyczne zlokalizowane są: w chlorosomach – u bakterii zielonych, chromatoforach – u bakterii purpurowych lub tylakoidach – u sinic.
Chlorosomy są pęcherzykowatymi strukturami połączonymi z błoną komórkową. Pełnią funkcję anten wychwytujących światło i przekazujących jego energię na bakteriochlorofil a, będący centrum reakcji wbudowanym w błonę komórkową. Podobną strukturę mają chromatofory.
Z kolei tylakoidy są wydłużonymi i spłaszczonymi błoniastymi strukturami, w które wbudowane są fikobilisomy – kompleksy składające się z barwników (fikobilin) i białek. Pełnią one funkcję anteny absorbującej światło i przekazującej jego energię do centrum aktywnego w fotosystemie PSII, w którym znajdują się cząsteczki chlorofilu a.
RiCWMS7kDdxor
Schemat przedstawia model struktury fikobilisomu. Cyframi oznaczono poszczególne elementy. Numerem pierwszym fikoerytrynę. Ma budowę podwójnych pierścieni występujących na sześciu rozgałęzieniach, będących antenami tej struktury białkowej. Numerem drugim oznaczono fikocyjaninę, która znajduje się pod fikoerytryną na rozgałęzieniach. Też ma postać podwójnych pierścieni koloru niebieskiego. Numerem trzecim allofikocyjaninę. Ten element składowy struktury ma kształt pierścieni barwy szarej. To trzy znajdujące się na sobie koła. Stanowią trzon struktury. Leżą na dwóch zielonych kwadratach. Te kwadraty to fotosystem PS II. Są zbiorem pigmentów chlorofilu, absorbujących głównie długość fali światła przy sześciuset osiemdziesięciu nanometrach. Wszystkie pierścienie fikobilisomu w swoim wnętrzu mają mniejsze czarne kuliste elementy. Przekazanie energii z anten absorbujących światło do centrum reakcji dokonuje się w czasie krótszym niż sto pikosekund.
Schemat przedstawia model struktury fikobilisomu. Cyframi oznaczono poszczególne elementy. Numerem pierwszym fikoerytrynę. Ma budowę podwójnych pierścieni występujących na sześciu rozgałęzieniach, będących antenami tej struktury białkowej. Numerem drugim oznaczono fikocyjaninę, która znajduje się pod fikoerytryną na rozgałęzieniach. Też ma postać podwójnych pierścieni koloru niebieskiego. Numerem trzecim allofikocyjaninę. Ten element składowy struktury ma kształt pierścieni barwy szarej. To trzy znajdujące się na sobie koła. Stanowią trzon struktury. Leżą na dwóch zielonych kwadratach. Te kwadraty to fotosystem PS II. Są zbiorem pigmentów chlorofilu, absorbujących głównie długość fali światła przy sześciuset osiemdziesięciu nanometrach. Wszystkie pierścienie fikobilisomu w swoim wnętrzu mają mniejsze czarne kuliste elementy. Przekazanie energii z anten absorbujących światło do centrum reakcji dokonuje się w czasie krótszym niż sto pikosekund.
Model struktury fikobilisomu.
Źródło: Englishsquare.pl Sp. z o.o., licencja: CC BY-SA 3.0.
W komórkach eukariotycznych fotosynteza zachodzi w chloroplastach. W błony tylakoidów gran wbudowane są fotosystemy PS I i PS II oraz system białkowych przenośników elektronów i protonów.
Błona tylakoidu zawiera dwa rodzaje fotosystemów, które ze sobą współdziałają podczas fazy jasnej fotosyntezy. W centrum reakcji fotosystemu I (PS I) znajduje się chlorofil a o maksimum absorpcji fali świetlnej o długości 700 nm, natomiast fotosystem II (PS II) zawiera w centrum reakcji chlorofil a o maksimum absorpcji fali o długości 680 nm. Pomiędzy nimi znajdują się cząsteczki tworzące fotosyntetyczny łańcuch przenoszący elektrony i protony.
Fosforylacja niecykliczna jest procesem, podczas którego dochodzi do syntezy ATP z wykorzystaniem obu fotosystemów, pomiędzy którymi są transportowane elektrony przy jednoczesnym powstaniu NADPH+HIndeks górny ++ oraz tlenu cząsteczkowego.
RojJjKOisMHOT
Wybierz jedno nowe słowo poznane podczas dzisiejszej lekcji i ułóż z nim zdanie.
Wybierz jedno nowe słowo poznane podczas dzisiejszej lekcji i ułóż z nim zdanie.
Źródło: Englishsquare.pl Sp. z o.o., Inga Wójtowicz, licencja: CC BY-SA 3.0.
Rośliny, które znajdują się w optymalnych dla siebie warunkach natężenia światła i stężenia dwutlenku węgla, przeprowadzają fosforylację niecykliczną. Natomiast w pewnych warunkach, na przykład okresowego niedoboru wody lub obniżonego poziomu dwutlenku węgla, wywołanego na przykład zamknięciem aparatów szparkowych, zachodzi fosforylacja cykliczna.
W fosforylacji cyklicznej wykorzystany jest jedynie fotosystem I i nie zachodzi fotoliza wody. Wybite z fotosystemu I elektrony trafiają natomiast na ferredoksynę, a następnie powracają do tego samego fotosystemu za pośrednictwem kompleksu cytochromów oraz plastocyjaniny.
Podczas tej wędrówki elektronów po przenośnikach elektronów dochodzi do transportu protonów do wnętrza tylakoidu i wytworzenia gradientu ich stężeń po obu stronach błony. Umożliwia to zajście chemiosmozy z wytworzeniem ATP, jednak nie powstaje NADPH+HIndeks górny ++ i nie tworzy się tlen cząsteczkowy.
R1cxuWVuh0RzJ
Grafikę opisano jako fosforylację cykliczną. Na ilustracji jest schemat błony zbudowanej z dwóch równoległych do siebie warstw zbudowanych z drobnych pomarańczowych kulek. To błona tylakoidu granum. Poniżej jest warstwa w kolorze zielonym. To wnętrze tylakoidu granum. Jest tam cząsteczka wody. Pomiędzy równoległymi rzędami kulek jest przestrzeń w kolorze jasnobrązowym. W tym obszarze znajdują się dwie struktury zbudowane z przylegających do siebie zielonych sześciokątów. Jeden to PS dwa, drugi PS jeden. W ich dolnej części, w jednym z sześciokątów, jest napis 2e indeks górny minus. W błonie są także struktury opisane jako PQ (przyczepione do PS dwa), Cyt. b6, Cyt. f, PC i FD (przyczepione do PS jeden), w pionie pomiędzy rzędami kulek jest napis: reduktaza. Po prawej stronie od napisu jest element znajdujący się zarówno poza błoną, jak i przechodzący przez błonę aż do wnętrza tylakoidu granum. Element ten ma szerszą górę i wąski dół. Opisany jest jako syntaza ATP. Poza błoną jest słońce. Z błony poprowadzono linie do chloroplastu, a konkretnie do stosu ułożonego z zielonych krążków. Wokół PS jeden są strzałki zaznaczone liniami przerywanymi. Krążą przeciwnie do wskazówek zegara w stronę PS dwa. Na PS jeden pada strzałka w postaci błyskawicy.
Ruch elektronów w trakcie fosforylacji cyklicznej. PS I — fotosystem pierwszy, PS II — fotosystem drugi, PQ — plastochinon, PC — plastocyjanina, Cyt. b6 i cyt. f — kompleks cytochromów b6f, FD — ferredoksyna, e− — elektron, .
Źródło: Englishsquare.pl Sp. z o.o., Inga Wójtowicz, licencja: CC BY-SA 3.0.
Warto zwrócić uwagę, że rośliny są zdolne do jednoczesnego przeprowadzenia obu typów fosforylacji, cyklicznej i niecyklicznej, jednak to fosforylacja niecykliczna dostarcza NADPH+HIndeks górny ++ – niezbędnego do fazy ciemnej fotosyntezy. Istnieje pogląd, iż na początku ewolucji pierwotne bakterie wykorzystywały proces fosforylacji cyklicznej do wytwarzania ATP z udziałem energii świetlnej.
RVdUQFrAI8cwy
Ilustracja przedstawia porównanie fosforylacji fotosyntetycznej niecyklicznej i cyklicznej. Schemat fosforylacji niecyklicznej. Podczas fosforylacji tej powstaje ATP i NADPH dodać H indeks górny plus. Na schemacie po lewej stronie jest zielony sześciokąt z napisem PS dwa, po prawej stronie sześciokąt z napisem PS jeden. Pomiędzy nimi jest podłużna struktura opisana jako przenośniki e indeks górny minus. Nad przenośnikiem jest początek strzałki z H indeks górny plus. Strzałka prowadzi przez przenośniki pod niego. Tam również H indeks górny plus. Po lewej stronie od PS dwa na dole jest cząsteczka wody. Po jej lewej stronie jest strzałka prowadząca do O indeks dolny dwa, po prawej stronie jest strzałka prowadząca do H indeks górny plus. Od jonu wodorowego prowadzi strzałka do jonu wodorowego znajdującego się pod przenośnikami e indeks górny minus. Od cząsteczki wody prowadzi czerwona strzałka. Nad nią jest e indeks górny minus. Strzałka prowadzi do NADP indeks górny plus strzałka do NADPH dodać H indeks górny plus. Zapis ten znajduje się po prawej stronie od PS jeden. Nad przenośnikami jest strzałka skierowana w górę do ATP. ATP, NADPH dodać H indeks górny plus oraz e indeks górny minus są zapisane na czerwono. W przypadku fosforylacji cyklicznej, w wyniku której powstaje tylko ATP, na schemacie jest ponownie PS dwa oraz PS jeden, a pomiędzy nimi przenośniki e indeks górny minus. Pod PS dwa po lewej stronie jest cząsteczka wody. Pomiędzy PS jeden i PS dwa krążą elektrony e indeks górny minus. Nad przenośnikami jest H indeks górny strzałka do jonu wodorowego znajdującego się poniżej przenośników. Nad przenośnikami jest strzałka w kierunku ATP. ATP oraz elektrony są zaznaczone na czerwono.
Porównanie fosforylacji fotosyntetycznej niecyklicznej i cyklicznej.
Źródło: Englishsquare.pl Sp. z o.o., Inga Wójtowicz, licencja: CC BY-SA 3.0.
Dwa oblicza RuBisCO
RuBisCO to enzym obecny w komórkach większości organizmów autotroficznych: archeonów, bakterii zielonych i purpurowych, sinic, protistów roślinopodobnych oraz roślin. Cząsteczka enzymu składa się z dwóch rodzajów podjednostek: większych i mniejszych. Podjednostki większe tworzą zasadniczą część cząsteczki enzymu, tzw. rdzeń i odpowiadają za funkcje katalityczne. Są kodowane przez geny chloroplastowe. Na biegunach cylindrycznego rdzenia znajdują się dwa pierścienie utworzone z podjednostek mniejszych, których obecność wpływa na aktywność katalityczną enzymu. Podjednostki mniejsze są kodowane przez geny jądrowe.
Rwo6Isy6ikHJQ
Ilustracja przedstawia strukturę enzymu RuBisCO. Duży, sferyczny obiekt zbudowany z małych kuleczek, przypomina kulę piany. Większość małych kuleczek jest kolorze szarym, grupy kuleczek w kolorach niebieskim i pomarańczowym znajdują się po prawej i po lewej stronie kuli.
Struktura enzymu RuBisCO. Podjednostki duże w kolorze szarym, podjednostki małe w kolorach niebieskim i pomarańczowym.
Źródło: Wikimedia Commons, domena publiczna.
RuBisCO katalizuje reakcję karboksylacji rybulozo‑1,5‑bisfosforanu (RuBP). Karboksylacja polega na przyłączeniu cząsteczki COIndeks dolny 22 do RuBP po wcześniejszej aktywacji enzymu. Aktywacja RuBisCO polega na przyłączeniu cząsteczki COIndeks dolny 22 i jonu MgIndeks górny 2+2+ do lizyny – aminokwasu obecnego w centrum aktywnym enzymu. Przyłączona cząsteczka dwutlenku węgla nie jest substratem, a jedynie związkiem aktywującym, decydującym o prawidłowym umieszczeniu jonu MgIndeks górny 2+2+ w centrum aktywnym enzymu. Jon magnezu jest właściwym kofaktorem RuBisCO. Dopiero wówczas aktywny katalitycznie enzym przyłącza do centrum aktywnego: COIndeks dolny 22, HIndeks dolny 22O i RuBP. Produktem pośrednim reakcji karboksylacji jest nietrwały związek sześciowęglowy, który natychmiast rozpada się na dwie cząsteczki związku trójwęglowego – kwasu 3‑fosfoglicerynowego (PGA). Reakcja karboksylacji zachodzi w czasie pierwszej reakcji fazy ciemnej fotosyntezy, zwanej cyklem Calvina. W dalszym etapie tego cyklu PGA zostaje zredukowany do aldehydu 3‑fosfoglicerynowego (PGAL), który częściowo jest przekształcany do heksoz będących źródłem energii, jak i służy do odtwarzania RuBP.
RUQDgYdJ17EHN
Na grafice przedstawiony jest cykl Calvina. 3 cząsteczki rybulozo-1,5-bisfosforanu (cząsteczka pięciowęglowa) z pomocą RuBisCO łączy się z trzema cząsteczkami dwutlenku węgla, w wyniku czego powstaje 6 cząsteczek trójwęglowego kwasu 3-fosfoglicerynowego. Następnie są one przekształcane w 6 cząsteczek trójwęglowego aldehydu 3-fosfoglicerynowego, które po usunięciu jednej cząsteczki trójwęglowej przekształcają się w 3 cząsteczki pięciowęglowego rybulozo-1,5-bisfosforanu, który ponownie wchodzi w reakcję z dwutlenkiem węgla katalizowaną przez RuBisCO.
Uproszczony przebieg cyklu Calvina. C z liczbą w indeksie dolnym oznacza substrat o danej liczbie atomów węgla. Liczba ze znakiem mnożenia oznacza ilość cząsteczek tego substratu biorących udział w pojedynczym cyklu – udział w powstaniu jednej cząsteczki triozy jako zysku netto.
Źródło: Englishsquare.pl sp. z o.o., licencja: CC BY-SA 3.0.
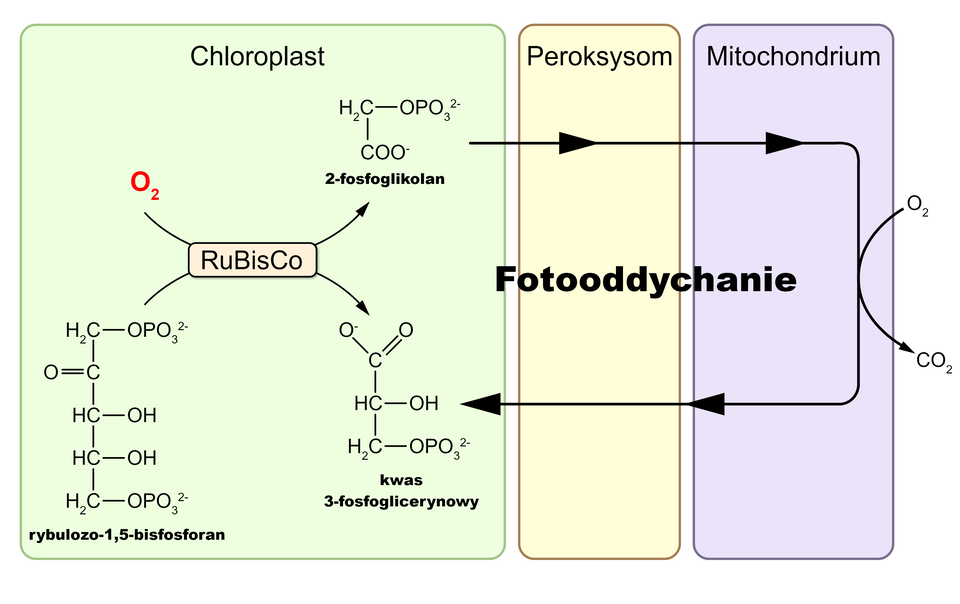
RuBisCO katalizuje również reakcję oksygenacji rybulozo‑1,5‑bisfosforanu (RuBP). Oksygenacja polega na przyłączeniu cząsteczki OIndeks dolny 22 do RuBP. Produktami reakcji oksygenacji są: jedna cząsteczka kwasu 3‑fosfoglicerynowego (PGA) i jedna cząsteczka 2‑fosfoglikolanu (PG). PGA ulega dalszym przekształceniom w cyklu Calvina, jednak wydajność fotosyntezy jest mniejsza. Natomiast 2‑fosfoglikolan, jako związek dwuwęglowy, ulega przekształceniom w czasie złożonych reakcji fotooddychania w peroksysomach i mitochondriach.
RSASM38F36Q1J
Schemat przedstawia uogólniony przebieg fotooddychania. W chloroplastach w wyniku reakcji katalizowanej przez RuBisCo z tlenu i rybulozo‑1,5‑bifosforanu powstaje 2‑fosfoglikolan oraz kwas 3‑fosfoglicerynowy. 2‑fosfoglikolan ulega kolejnym reakcjom w procesie fotooddychania w peroksysomach i mitochondriach, ulega dekarboksylacji i zostaje przekształcony w kwas 3‑fosfoglicerynowy.
Uogólniony przebieg fotooddychania.
Źródło: Na podstawie Wikimedia Commons, Yikrazuul, Englishsquare.pl sp. z o.o., licencja: CC BY-SA 3.0.
W czasie fotoodychania dochodzi do uwolnienia COIndeks dolny 22 i zużycia energii, dlatego proces ten ogranicza wydajność fotosyntezy. Z punktu widzenia energetyki komórki roślinnej, jest to proces niekorzystny.
W sprzyjających warunkach środowiska, przy odpowiednim natężeniu światła i umiarkowanej temperaturze aparaty szparkowe roślin są otwarte. Umożliwia to usuwanie pary wodnej z przestrzeni powietrznych w roślinie i pobieranie COIndeks dolny 22 z otoczenia, pozwalając zachować wysoki stosunek COIndeks dolny 22 do OIndeks dolny 22. Duża zawartość dwutlenku węgla w tkankach liścia sprawia, że karboksylacja RuBP prowadzona przez RuBisCO przeważa nad jego oksygenacją przez ten enzym (w optymalnych warunkach dla roślin C3 stosunek wiązania przez RuBisCO CoIndeks dolny 22 do OIndeks dolny 22 wynosi 4:1). W niesprzyjających warunkach środowiska, przy zbyt dużym natężeniu światła i wysokiej temperaturze aparaty szparkowe roślin są zamknięte. Nie zachodzi wówczas wymiana gazowa, co uniemożliwia pobieranie COIndeks dolny 22 z otoczenia i w tkankach liścia pojawia się niski stosunek COIndeks dolny 22 do OIndeks dolny 22. Duża zawartość tlenu w tkankach liścia sprawia, że RuBisCO przeprowadza intensywniej reakcję oksygenacji RuBP.
R1KqxOIW1q70j
Schemat przedstawia dwa procesy fotooddychanie i fotosyntezę. W cyklu fotooddychania RuBisCo bierze udział w reakcji RuBP z tlenem, w wyniku czego powstaje PG i PGA. Biorą one udział w kolejnej reakcji z ATP i NADH, w wyniku której powstaje PGA i dwutlenek węgla. PGA ulega reakcji z ATP, w wyniku czego na nowo powstaje RuBP. W cyklu fotosyntezy RuBisCo bierze udział w reakcji RuBP z dwutlenkiem węgla, w wyniku której powstaje PGA. PGA ulega reakcji z ATP i NADPH, w wyniku czego powstaje PGAL. Z PGAL odłączona zostaje heksoza, a przyłączone zostaje ATP, w wyniku czego na nowo powstaje RuBP.
Dwa oblicza enzymu RuBisCO.
Źródło: Englishsquare.pl sp. z o.o., licencja: CC BY-SA 3.0.
Fotooddychanie - proces konkurencyjny do fotosyntezy
Enzym RuBisCO ma szczególne właściwości – wykazuje powinowactwo zarówno do dwutlenku węgla, jak i do tlenu. Zatem może katalizować reakcje karboksylacji i oksygenacji rybulozo‑1,5‑bisfosforanu (RuBP).
W zależności od stosunku stężeń COIndeks dolny 22 i OIndeks dolny 22 w miękiszu asymilacyjnym liścia, jeden rodzaj reakcji będzie zachodził z większą wydajnością niż drugi:
reakcja karboksylacji zachodzi przy wysokim stężeniu dwutlenku węgla i jednocześnie niskim stężeniu tlenu w komórkach liścia;
reakcja oksygenacji zachodzi przy niskim stężeniu dwutlenku węgla i jednocześnie wysokim stężeniu tlenu w komórkach liścia.
Karboksylacja RuBP zapoczątkowuje cykl Calvina – przyłączenie jednej cząsteczki COIndeks dolny 22 skutkuje wytworzeniem dwóch cząsteczek kwasu 3‑fosfoglicerynowego (PGA). Związek ten ulega dalszym przekształceniom, w efekcie czego dochodzi do syntezy cukrów. Natomiast oksygenacja RuBP zapoczątkowuje proces fotooddychania – przyłączenie jednej cząsteczki OIndeks dolny 22 skutkuje wytworzeniem jednej cząsteczki kwasu 3‑fosfoglicerynowego (PGA) i jednej cząsteczki 2‑fosfoglikolanu (PG).
RYwQQDyu3TIhl
Ilustracja interaktywna przedstawiaja proces oksygenacji rybulozo jeden pięć bisfosforanu. Przyłączenie cząsteczki tlenu (O indeks dolny 2) powoduje wytworzenie cząsteczki kwasu trzy fosfoglicerynowego (PGA) i cząsteczki 2 fosfoglikolanu (PG). 1. RuBisCO przyłącza tlen do rybulozo jeden pięć bisfosforanu, 2. Kwas trzy fosfoglicerynowy (PGA), 3. dwa fosfoglikan (PG).
Ilustracja interaktywna przedstawiaja proces oksygenacji rybulozo jeden pięć bisfosforanu. Przyłączenie cząsteczki tlenu (O indeks dolny 2) powoduje wytworzenie cząsteczki kwasu trzy fosfoglicerynowego (PGA) i cząsteczki 2 fosfoglikolanu (PG). 1. RuBisCO przyłącza tlen do rybulozo jeden pięć bisfosforanu, 2. Kwas trzy fosfoglicerynowy (PGA), 3. dwa fosfoglikan (PG).
Proces fotooddychania zachodzi u roślin przy niskim stosunku COIndeks dolny 22 do OIndeks dolny 22. Sytuacja, w której w komórkach miękiszu asymilacyjnego występuje niskie stężenie dwutlenku węgla i wysokie stężenie tlenu, ma miejsce w gorące, słoneczne dni. Przy dużym natężeniu światła i wysokiej temperaturze powietrza nasila się transpiracja. Rośliny ograniczają ten proces przez zamykanie aparatów szparkowych, co umożliwia zmniejszenie strat wody na zasadzie parowania. Jednak przy zamkniętych aparatach szparkowych nie zachodzi wymiana gazowa: roślina nie pobiera z atmosfery dwutlenku węgla niezbędnego do fotosyntezy i nie usuwa z przestworów międzykomórkowych tlenu, powstającego w czasie tego procesu. Stężenie dwutlenku węgla w komórkach miękiszu asymilacyjnego maleje, gdyż gaz ten jest zużywany w fazie ciemnej fotosyntezy. Jednocześnie stężenie tlenu w komórkach miękiszu asymilacyjnego wzrasta, gdyż gaz ten jest wydzielany w czasie fazy jasnej fotosyntezy. W tym momencie rozpoczyna się proces fotooddychania.
R1PKQr0NIlAX6
Ilustracja interaktywna przedstawiająca dwufunkcyjność enzymu karboksylazy rybulozo 1‑5 bisfosforanu. W warunkach niskiego stosunku dwutlenku węgla do tlenu zachodzi fotooddychanie. W procesie tym do rybulozo 1,5 bisfoforanu przyłączona zostaje cząsteczka tlenu; w efekcie powstają aminokwasy i dwutlenek węgla.
Z kolei w warunkach wysokiego stosunku dwutlenku węgla do tleniu zachodzi fotosynteza. W procesie tym do rybulozo jeden pięć bisfoforanu przyłączona zostaje cząsteczka dwutlenku węgla. W efekcie fotosyntezy powstają cukry i inne związki organiczne.
Na ilustracji zaznaczono: 1. Niski stosunek CO2 do O2 , 2. Wysoki stosunek CO2 do O2
Dwufunkcyjność enzymu RuBisCO.
Źródło: Englishsquare.pl Sp. z o.o., licencja: CC BY-SA 3.0.
Fotooddychanie przypomina nieco oddychanie tlenowe zachodzące wewnątrz mitochondriów. W obu procesach substratem jest tlen, a produktem dwutlenek węgla. Jednak w odróżnieniu od procesów tlenowego oddychania wewnątrzkomórkowego, w czasie fotooddychania nie dochodzi do wydzielenia energii i jej magazynowania w wysokoenergetycznych wiązaniach ATP.
R7BgJvq7C1l9U
Wybierz jedno nowe słowo poznane podczas dzisiejszej lekcji i ułóż z nim zdanie.
Fotooddychanie występuje u roślin typu CIndeks dolny 33, które nie posiadają mechanizmów zwiększających stężenie dwutlenku węgla (jak rośliny typu CIndeks dolny 44) lub mechanizmów magazynowania dwutlenku węgla (jak rośliny typu CAM). Nie jest do końca jasne, czy u roślin typu CIndeks dolny 44 i CAM fotooddychanie nie występuje w ogóle, czy też wpływ tego procesu na produktywność tych roślin jest znikomy. Fotooddychanie ogranicza wydajność fotosyntezy i tym samym zmniejsza produktywność roślin typu CIndeks dolny 33. Dzieje się tak dlatego, że tlen, konkurując z dwutlenkiem węgla o miejsce aktywne enzymu RuBisCO, obniża wydajność karboksylacji RuBP. Rośliny użytkowe, uprawiane przez człowieka dla celów spożywczych, to w większości rośliny typu C3, u których występuje proces fotooddychania. Z gospodarczego punktu widzenia jest to proces niekorzystny, gdyż obniża plonowanie roślin.
Dlaczego rośliny przeprowadzają fotooddychanie?
Katalityczne właściwości enzym RuBisCO kształtowały się na wczesnych etapach rozwoju życia na Ziemi. Ówczesny skład ziemskiej atmosfery był odmienny od współczesnego: większa zawartość dwutlenku węgla i niewielka zawartość tlenu. Zdolność RuBisCO do oksygenacji RuBP prawdopodobnie nie miała istotnego wpływu na ogólną produktywność pierwszych organizmów autotroficznych dlatego, że duża zawartość dwutlenku węgla w atmosferze zapewniała wydajną karboksylację RuBP. Obecnie w atmosferze jest znacznie więcej tlenu niż dwutlenku węgla, dlatego intensywność fotooddychania jest większa. Zachowanie fotooddychania, będącego kosztownym energetycznie szlakiem metabolicznym ma najprawdopodobniej związek z koniecznością usuwania toksycznego glikolanu.
R14ioJ12ONYHo
Grafika przedstawia proces fotooddychania. Rozpoczyna się on w chloroplastach, gdzie w wyniku reakcji RuBP z tlenem i dwutlenkiem węgla powstaje kwas 3‑fosfoglicerynowy oraz P‑glikolan. P‑glikolan przekształca się w glikolan. Kwas glicerynowy z wykorzystaniem ATP przekształca się w kwas 3‑fosfoglicerynowy. Następnie w peroksysomach glikolan reaguje z tlenem, w wyniku czego powstaje glioksalan i nadtlenek wodoru. W reakcji glioksalanu z seryną powstaje glicyna oraz kwas hydroksypirogronowy. Glicyna w mitochondriach z użyciem NAD+ i z uwolnieiem NH4+ oraz CO2 przekształca się w serynę, która bierze udział w reakcji z glioksalanem. Kwas hydroksypirogronowy powstały w wyniku tej reakcji reaguje w peroksysomach z NADH, w wyniku czego powstaje kwas glicerynowy, który w chloroplastach zostaje przekształcony do kwasu 3‑fosfoglicerynowego.
Uproszczony schemat przebiegu fotooddychania.
Źródło: Englishsquare.pl sp. z o.o., licencja: CC BY-SA 3.0.
Sztuczna fotosynteza
Sztuczna fotosynteza jest procesem przeprowadzanym przez urządzenia, które wykorzystują energię świetlną do przemian łatwo dostępnych i prostych związków chemicznych (wody, dwutlenku lub azotu) w celu otrzymania:
wysokoenergetycznych związków chemicznych;
płynnego paliwa.
Opracowanie wydajnych, tanich i bezpiecznych układów przeprowadzających sztuczną fotosyntezę wymaga użycia kompleksów chemicznych naśladujących przebieg naturalnej fotosyntezy. Sztuczny układ fotosyntetyczny składa się z co najmniej trzech komponentów tworzących tzw. triadę.
R1GL5mFF1B4LD
Grafika przedstawia uproszczony schemat przebiegu sztucznej fotosyntezy. Składa się ona z trzech połączonych ze sobą kompleksów chemicznych D, P oraz A. W miejscu D dochodzi do rozkładu dwóch cząsteczek wody na tlen oraz cztery wodory o dodatnim ładunku. Kompleks D jest donorem elektronu dla kompleksu P. Tam pod wpływem energii słonecznej elektron ten jest przekazywany do kompleksu A. Tam cztery wodory o dodatnim ładunku przechodzą w dwie cząsteczki wodoru.
Uproszczony schemat przebiegu sztucznej fotosyntezy. Przepływ elektronów pomiędzy miejscami D i A, gdzie D to kompleks chemiczny będący donorem elektronów i A to kompleks chemiczny będący akceptorem elektronów. Transfer elektronów jest możliwy pod wpływem absorpcji energii świetlnej przez miejsce P.
Źródło: PatríciaR, Wikimedia Commons, licencja: CC 0 1.0.
Miejsce P zbiera światło i pełni rolę podobną do anten fotoukładów występujących w naturalnej fotosyntezie. W opracowanych sztucznych układach miejsce P tworzy kompleks chemiczny, w skład którego wchodzi metal – ruten (Ru) w formie jonu RuIndeks górny 2+2+. Pod wpływem pochłoniętej energii świetlnej kompleks rutenu ulega wzbudzeniu i dochodzi do wybicia elektronów, które przekazywane są na miejsce A. Miejsce A to katalizator, będący akceptorem elektronów zdolnym do syntezy wodoru. Jednocześnie miejsce D tworzy kompleks chemiczny, w skład którego wchodzi metal – mangan (Mn) w formie jonu MnIndeks górny 2+2+. Kompleks manganowy to katalizator zdolny do oddania elektronów na fotoutlenione miejsce P. Taki transfer elektronów skutkuje powstaniem kompleksu manganowego MnIndeks górny 3+3+ lub MnIndeks górny 4+4+ zdolnego do rozkładu wody według reakcji:
Opracowanie wydajnych i wytrzymałych układów przeprowadzających sztuczną fotosyntezę pozwoli wykorzystać światło słoneczne jako nieograniczone źródło energii. Najbardziej obiecujące rozwiązania technologiczne dotyczą pozyskiwania paliwa słonecznego i prądu elektrycznego ze sztucznych układów.
Trwają prace badawcze nad wyprodukowaniem paliwa słonecznego w postaci płynnego wodoru, metanolu lub etanolu, do produkcji których wykorzystuje się energię słoneczną. Spośród podanych przykładów wodór jest paliwem ekologicznym i bezpiecznym dla środowiska. Dzieje się tak dlatego, że powstaje on w wyniku rozkładu cząsteczek wody pod wpływem energii świetlnej, a jedynym produktem jego spalania jest woda.
Sztuczna błona komórkowa
Sztuczna błona komórkowa
Przeprowadzane są prace badawcze nad wytworzeniem sztucznej błony. Cząsteczki wody przechodzące przez sztuczny układ ulegałyby rozkładowi do tlenu i wodoru pod wpływem energii świetlnej. Obecnie poszukiwany jest katalizator i akceptor. Związek będący katalizatorem powinien rozpoczynać i przyspieszać rozkład cząsteczek wody pod wpływem pochłanianych fotonów. Z kolei akceptor powinien wydajnie wychwytywać i magazynować elektrony uwolnione z rozpadających się cząsteczek wody.
Złoty liść
Złoty liść
W 2008 roku zespół naukowców pod kierownictwem Petera Ciesielskiego z Vanderbilt University w Nashville skonstruował tzw. złoty liść. Konstrukcja układu opierała się na kompleksach białkowych tworzących fotosystem I (PS I) wyizolowanych z liści szpinaku i umieszczonych na złotych płytkach. Przy dostępie światła słonecznego kompleksy fotosystemu I generowały wolne elektrony. Odbiorcą elektronów była złota płytka, z której mogły one zostać pobrane w postaci prądu elektrycznego. Wydajność procesu jest niewielka i pod względem ekonomicznym nie dorównuje obecnym rozwiązaniom technologicznym służącym pozyskiwaniu energii elektrycznej z energii słonecznej. Wciąż jednak trwają prace zmierzające do zwiększenia efektywności procesu przemiany energii słonecznej w energię elektryczną z wykorzystaniem naturalnych substancji występujących w roślinach.
Gospodarcze znaczenie sztucznej fotosyntezy
Wykorzystanie układów przeprowadzających sztuczną fotosyntezę najprawdopodobniej umożliwi w przyszłości wydajną i bezpieczną dla środowiska produkcję prądu elektrycznego lub paliwa słonecznego. Jest nadzieja, że zmiana dotychczasowych sposobów pozyskiwania energii elektrycznej i rezygnacja ze spalania paliw kopalnych przyczyni się do redukcji ilości dwutlenku węgla w atmosferze, którego zawartość uległa znacznemu podwyższeniu po rewolucji przemysłowej.
RQhvxZmIotNlS
Nagranie dźwiękowe lekcji, dotyczące tematu sztucznych procesów naśladujących fotosyntezę.
Nagranie dźwiękowe lekcji, dotyczące tematu sztucznych procesów naśladujących fotosyntezę.
Źródło: Englishsquare.pl Sp. z o. o., licencja: CC BY-SA 3.0.
Polecenie 2
R16qVOTq6nSYW
Opisz, jakie metody stosuje się do uzyskania dużych ilości wodoru. (Uzupełnij).
Polecenie 3
RGWiERP8X5A9o
{duzepole@Wyjaśnij w jaki sposób „złoty liść" wykorzystywany jest do produkcj.
Współdziałanie fitohormonów w regulacji procesów rozwojowych roślin
Na fitohormonalną regulację morfogenezy roślin wpływ mają: miejsce syntezy, kierunek transportu oraz rozmieszczenie fitohormonów.
Synteza i transport auksyn
Synteza i transport auksyn
Głównym miejscem biosyntezy auksyn są młode tkanki, zwłaszcza merystem wierzchołkowy pędu oraz rozwijające się liście. Auksyny są przekazywane polarnie z wierzchołka pędu ku jego dołowi, czyli bazypetalnie. Transport odbywa się z miejsca syntezy auksyny za pośrednictwem komórek miękiszowych wiązek przewodzących (pasmami drewna i łyka) do podstawy pędu.
Synteza i transport giberelin
Synteza i transport giberelin
Gibereliny są syntetyzowane w rozwijających się liściach, korzeniach, nasionach oraz owocach. Przemieszczają się swobodnie we wszystkich kierunkach w organizmie rośliny przez elementy przewodzące łyka i drewna.
Synteza i transport cytokinin
Synteza i transport cytokinin
Cytokininy są wytwarzane głównie w korzeniach, a stamtąd transportowane do pędu, zarówno przez elementy przewodzące drewna, jak i łyka.
Przestrzenne, czasowe czy też ilościowe rozmieszczenie fitohormonów podlega podwójnej regulacji – ze strony genomu i środowiska zewnętrznego. Oznacza to, że fitohormony są ważnymi czynnikami pośredniczącymi w koordynacji procesów wzrostu i w odpowiedzi na bodźce środowiskowe.
Morfogeneza pędu
R1DseSDIseLET
Wymyśl pytanie na kartkówkę związane z tematem materiału.
Morfogeneza liścia
RyLmPhQdw1ipL
Wymyśl pytanie na kartkówkę związane z tematem materiału.
Różnicowanie tkanek przewodzących
RiXTySklUj5lp
Wybierz jedno nowe słowo poznane podczas dzisiejszej lekcji i ułóż z nim zdanie.
Powstawanie korzeni bocznych i przybyszowych
R14POj2SowgRQ
Wybierz jedno nowe słowo poznane podczas dzisiejszej lekcji i ułóż z nim zdanie.
Ruchy nutacyjne
Ruchy nutacyjne zalicza się do autonomicznych ruchów wzrostowych. Zachodzą one wskutek nierównomiernego wzrostu organu rośliny. Dzięki ruchom nutacyjnym rośliny potrafią odnajdywać podpory, a także owijać się wokół nich.
R17PdJgk06O9c
Wymyśl pytanie na kartkówkę związane z tematem materiału.
RW4BH2nEeuPv6
Film przedstawia kiełkowanie nasion posadzonych w małych, czarnych doniczkach. Doniczki umieszczone są w płaskim naczyniu, stoją jedna obok drugiej. W naczyniu postawiono dwie doniczki z starszymi nasionami Fasoli zwykłej oraz Dyni zwyczajnej. Pomiędzy nimi postawiono naczynie bez dna z wodą, które zapewnia równomierne nawodnienie wszystkim doniczkom. Dalej, w kolejnych dwóch doniczkach posadzono młode nasiona, Groch zwyczajny i Fasolę zwykłą. Wraz z upływem czasu z młodszych nasion wyrastają wysokie rośliny, podczas gdy ze starszych nasion, niewielkie, krępe rośliny.
Film przedstawia kiełkowanie nasion posadzonych w małych, czarnych doniczkach. Doniczki umieszczone są w płaskim naczyniu, stoją jedna obok drugiej. W naczyniu postawiono dwie doniczki z starszymi nasionami Fasoli zwykłej oraz Dyni zwyczajnej. Pomiędzy nimi postawiono naczynie bez dna z wodą, które zapewnia równomierne nawodnienie wszystkim doniczkom. Dalej, w kolejnych dwóch doniczkach posadzono młode nasiona, Groch zwyczajny i Fasolę zwykłą. Wraz z upływem czasu z młodszych nasion wyrastają wysokie rośliny, podczas gdy ze starszych nasion, niewielkie, krępe rośliny.
Kiełkowanie nasion i wzrost młodych roślin z widocznymi ruchami nutacyjnymi młodych pędów, sfilmowane metodą poklatkową.
Źródło: Harald Niemczyk, muzyka: Naoya Sakamata, Pixabay, licencja: CC BY 3.0. CC-BY 3.0.
Kiełkowanie nasion i wzrost młodych roślin z widocznymi ruchami nutacyjnymi młodych pędów, sfilmowane metodą poklatkową.
Źródło: Harald Niemczyk, muzyka: Naoya Sakamata, Pixabay, licencja: CC BY 3.0. CC-BY 3.0.
Film przedstawia kiełkowanie nasion posadzonych w małych, czarnych doniczkach. Doniczki umieszczone są w płaskim naczyniu, stoją jedna obok drugiej. W naczyniu postawiono dwie doniczki z starszymi nasionami Fasoli zwykłej oraz Dyni zwyczajnej. Pomiędzy nimi postawiono naczynie bez dna z wodą, które zapewnia równomierne nawodnienie wszystkim doniczkom. Dalej, w kolejnych dwóch doniczkach posadzono młode nasiona, Groch zwyczajny i Fasolę zwykłą. Wraz z upływem czasu z młodszych nasion wyrastają wysokie rośliny, podczas gdy ze starszych nasion, niewielkie, krępe rośliny.
Polecenie 4
R1QREu9RmU0z41
Przeanalizuj symulację interaktywną i określ przedstawiony w niej typ ruchu rośliny. (Uzupełnij).
RY1D8Z3lyPS6S1
Ilustracja przedstawia schemat wzrostu rośliny wokół prostego, drewnianego słupka.
Roślina wykonująca ruchy nutacyjne „rysuje” w powietrzu nieregularne okręgi.
Do zmniejszenia amplitudy ruchu dochodzi wówczas, gdy wzrastająca roślina napotyka przeszkodę i zaczyna się wokół niej owijać.
Im szersza w przekroju jest napotkana przeszkoda, tym większa amplituda ruchu pnącej się po niej rośliny.
Źródło: Englishsquare.pl Sp. z o.o., licencja: CC BY-SA 3.0.
Polecenie 5
R10V803HKkCZi
Przeanalizuj poniższą grafikę i podaj przykłady gatunków roślin wykonujących poszczególne z ruchów nutacyjnych. (Uzupełnij).
Polecenie 6
R1B9c7nYBzVgF
Wymyśl pytanie na kartkówkę związane z tematem materiału.